DNA replikasyonu sırasında oluşan stresin yönetilmesi ve hasarlı DNA replikasyon çatallarının onarılması, genom bütünlüğünün korunması açısından temel süreçlerden biridir. İnsan hücrelerinde ATR kinazı, ATRIP proteiniyle birlikte ATR–ATRIP kompleksini oluşturarak bu yanıtın düzenlenmesinde görev almaktadır. Kompleksin başlıca hedeflerinden biri olan Chk1’in (hücre döngüsü kontrolünde görev alan kinaz) fosforilasyonu, replikasyon çatallarının onarılması için hücre döngüsünün S/G2 ve G2/M kontrol noktalarında durdurulmasına katkı sağlamaktadır. ATR–ATRIP kompleksi bazal düzeyde Chk1 fosforilasyonu gerçekleştirebilse de tam aktivasyonu için TopBP1 adlı düzenleyici proteinin etkileşimi gerekmektedir. Bununla birlikte ATR–ATRIP kompleksinin aktivasyon mekanizması ve klinik araştırmalarda incelenen ATR inhibitörlerinin moleküler düzeydeki seçiciliği tam olarak açıklığa kavuşmamıştır.
Lingling Wang ve çalışma arkadaşlarının gerçekleştirdiği araştırma, ATR–ATRIP kompleksinin aktivasyon ve inhibisyon mekanizmalarını farklı işlevsel durumlarda yapısal olarak ortaya koymayı amaçlamaktadır. Araştırmacılar özellikle ATP bağlanmasının ATR kinazını katalize hazır hâle getirip getirmediğini, TopBP1’in bu kompleksi hangi mekanizma üzerinden etkinleştirdiğini ve fosforilasyonun ATR–ATRIP ile Chk1 arasındaki etkileşimi nasıl değiştirdiğini incelemiştir. Çalışmanın bir diğer amacı ise gartisertib, berzosertib, ceralasertib ve elimusertib adlı dört ATR inhibitörünün katalitik bölgeye bağlanma biçimlerini ve seçiciliklerinin yapısal temelini belirlemektir.
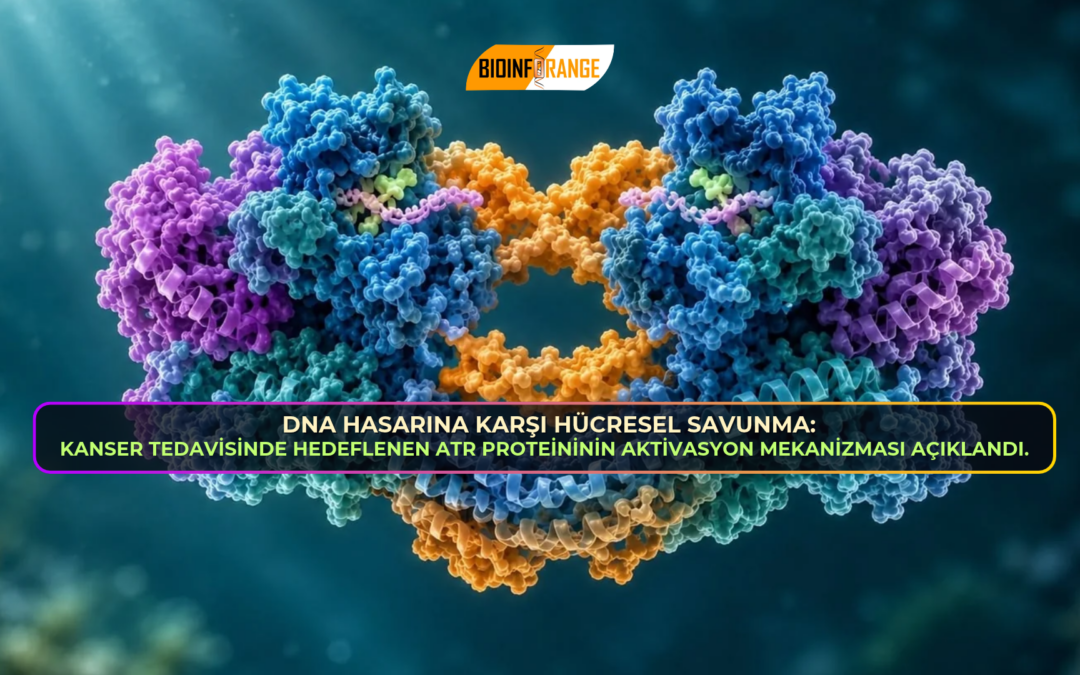
Bu amaçla araştırmacılar, insan ATR–ATRIP kompleksinin farklı işlevsel durumlarını yüksek çözünürlüklü kriyo-elektron mikroskopisi (cryo-EM; biyomoleküler komplekslerin üç boyutlu yapısının belirlenmesini sağlayan yöntem) kullanarak incelemiştir. Çalışmada ATPγS (ATP’nin hidrolize karşı dirençli bir analoğu) bağlı ön katalitik ATR–ATRIP kompleksi 3,0 Å, ATPγS ve Chk1 bağlı katalitik kompleks 2,7 Å, TopBP1 ve Chk1 içeren aktive edilmiş kompleks 3,6 Å çözünürlükte belirlenmiştir. TopBP1 uzaklaştırıldıktan sonra elde edilen fosforillenmiş ATR–ATRIP kompleksinin yapısı ise 3,5 Å çözünürlükte çözülmüştür. Ayrıca dört inhibitörle oluşturulan ATR–ATRIP komplekslerinin yapıları 2,7–3,2 Å aralığında belirlenmiştir. Yapısal analizler; biyokimyasal kinaz aktivitesi, fosforilasyon, mutasyon ve protein bağlanma deneyleriyle desteklenmiştir.
Bulgular, ATPγS bağlanmasının ATR’nin katalitik merkezinde G-loop ve Lys-Asp açısından zengin LA-loop gibi yapısal elemanların konumunu değiştirerek kataliz için uygun bir konformasyon oluşturduğunu göstermektedir. Bu değişiklikler katalitik yarığın düzenlenmesini ve iki Mg²⁺ iyonunun koordinasyonunu desteklemektedir. Chk1 ise ATR kinaz domenindeki belirli bir oluğa yerleşerek S317 bölgesini fosforilasyona uygun konumda tutmaktadır. Bununla birlikte tam aktivasyon için TopBP1 etkileşimi önem taşımaktadır. TopBP1, ATR–ATRIP kompleksinin HEAT tekrarlarından oluşan yapısal iskeletine bağlanarak iki protomerin asimetrik düzenini yaklaşık simetrik bir konformasyona dönüştürmekte ve otofosforilasyonu desteklemektedir. TopBP1 üzerindeki W1145 amino asidinin mutasyonuyla bu aktivasyonun gerçekleşememesi, söz konusu etkileşimin önemini ortaya koymaktadır. Ayrıca fosforilasyonun Chk1’in ATR–ATRIP kompleksine bağlanmasını artırdığı belirlenmiştir. Fosforillenmiş ATR–ATRIP, TopBP1 uzaklaştırıldıktan sonra yeniden asimetrik bir yapı benimsemesine rağmen Chk1’i fosforilleme aktivitesini korumaktadır.
İnhibitörlere ilişkin yapılar ise ATR’nin katalitik cebindeki yapısal esnekliğin seçici inhibisyonda önemli olduğunu ortaya koymaktadır. Dört inhibitörün tamamı ATP bağlanma bölgesini hedeflerken adenine bağlanma cebi, iç hidrofobik cep, riboz bağlanma bölgesi ve trifosfat bağlanma bölgesi gibi alt ceplerle farklı biçimlerde etkileşim kurmaktadır. Gartisertib ve berzosertib, ATP bağlanma cebinin dışına uzanan daha geniş etkileşim alanları oluştururken ceralasertib ve elimusertib daha kompakt bağlanma konformasyonları sergilemektedir. Ceralasertibin LA-loop üzerinde oluşturduğu yerel yapısal değişiklikler, elimusertibin ise daha açık bir konformasyonu koruması bu iki inhibitör arasındaki potens farklılığına katkıda bulunabilecek mekanizmalar olarak değerlendirilmektedir. Ayrıca ATR’nin diğer PIKK ailesi kinazlarından ayrılan amino asit bileşimi ve cep geometrisinin inhibitör seçiciliğinde rol oynadığı gösterilmiştir. Araştırmacılar, elde edilen yapıların ATR aktivasyonunun ve inhibisyonunun moleküler mekanizmalarını açıklayan bir yapısal çerçeve sunduğunu ve yeni nesil ATR hedefli kanser tedavilerine yönelik inhibitörlerin tasarımına katkı sağlayabileceğini belirtmektedir.
Yazar: Merve Bulut
Editör: Özsu Deniz Balkaya
Referans: Wang, L., Wang, M., Zhao, L., Rao, Q., Wu, H., Ma, B., Wang, J., Zheng, J., Li, Y., Xu, Y., Guo, J., Cheng, J., & Qiao, S. (2026). Mechanistic insights into phosphorylation-driven activation and therapeutic inhibition of human ATR–ATRIP. Nature Structural & Molecular Biology, 33, 1690–1703. https://doi.org/10.1038/s41594-026-01887-4
-Bioinforange Bilimsel Haber Servisi-
Haber Yazıları, 20> Etki Faktörlü Q1 dergilerinde yayınlanan (listesi için tıklayınız)
bilimsel araştırmaların ekip arkadaşlarımız tarafından incelenip derlenmesi ile hazırlanmaktadır.
