Özet
Hücresel yaşlanma (senesens), kalıcı hücre döngüsü duraklamasının yanı sıra belirgin salgısal ve metabolik yeniden programlanma ile karakterize edilen; doku homeostazını fizyolojik bağlamda koruyan, kronikleştiğinde ise doku mimarisini bozan çift yönlü bir süreçtir. Bu derlemede hücresel senesens, kronik inflamasyon ve fibrozis arasındaki patofizyolojik etkileşimler, bozulmuş doku rejenerasyonu, ortak moleküler sinyal yolakları, yapay zekâ destekli ilaç keşfi ve klinik çeviri süreçleri bütüncül olarak ele alınmaktadır. Alveoler tip 2 (AT2) epitel hücresi senesensi akciğer fibrozisinin başlamasında ve ilerlemesinde nedensel bir rol üstlenirken; karaciğer ve akciğerdeki belirli mezenkimal ve stellat hücre alt gruplarında gelişen senesens hücre dışı matriks (ECM) birikimini sınırlandırabilmekte veya epitel onarım nişini destekleyebilmektedir. Siklik GMP-AMP sentaz–interferon genleri uyarıcısı (cGAS–STING) ekseni, interlökin-11 (IL-11) sinyali ve mitokondriyal kalite kontrol düzenleyicileri yaşlanma ile fibrozis kesişimindeki başlıca ortak terapötik hedefleri oluşturmaktadır. Makine öğrenmesi ve derin öğrenme modelleri, yeni senolitik kimyasal uzayların keşfine ve senesent hücrelerin morfolojik veya transkriptomik verilerden yüksek verimli saptanmasına olanak tanımaktadır. Üretken yapay zekâ iş akışıyla tasarlanan küçük moleküllü TRAF2 ve NCK ile etkileşen kinaz (TNIK) inhibitörü rentosertib, idiyopatik pulmoner fibrozis (IPF) hastalarında yürütülen 12 haftalık faz 2a çalışmasında erken dönem spirometrik etkinlik sinyali üretirken; mevcut senolitik kombinasyonların klinik verileri erken faz uygulanabilirlik ve tolerabilite düzeyiyle sınırlı kalmaktadır. Hesaplamalı modellerde eğitim-test yanlılık riski, bağımsız dış doğrulama eksikliği ve senesens biyobelirteçlerinin hücre tipine göre gösterdiği heterojenlik, klinik çeviri sürecindeki temel yöntemsel sınırlılıkları oluşturmaktadır.
Anahtar Kelimeler: Senolitikler, Senesens ile ilişkili salgısal fenotip, Alveoler epitel hücresi, Makine öğrenmesi, cGAS–STING ekseni, İnterlökin-11, TNIK inhibitörü.
- Giriş
Yaşlanma, birbiriyle etkileşim hâlindeki hücresel ve moleküler değişimlerin bütününü kapsayan çok boyutlu bir biyolojik süreçtir; bu süreçte hücresel yaşlanma (senesens), kronik inflamasyon, mitokondriyal işlev bozukluğu ve kök hücre tükenmesiyle doğrudan bağlantılı temel bir bileşen olarak yer almaktadır1. Hücresel senesens; tümör baskılanması, embriyonik gelişim, doku onarımı ve yaşlanma fizyolojisinde çift yönlü işlevler üstlenmektedir2. Akut hasar yanıtında gelişen geçici senesens doku homeostazını ve onarımını desteklerken, senesent hücrelerin dokularda kalıcı olarak birikmesi kronik inflamasyonu ve ilerleyici doku işlev kaybını tetiklemektedir2.
Senesens ile fibrotik hastalıklar arasındaki patofizyolojik etkileşimin en belirgin şekilde ortaya çıktığı klinik tablo, akciğerde gelişen idiyopatik pulmoner fibrozistir (IPF)3. IPF patogenezinde telomer hasarı, mitokondriyal işlev bozukluğu, senesens ile ilişkili salgısal fenotip (SASP), dönüştürücü büyüme faktörü-β (TGF-β) sinyali ve epitel rejenerasyon yetersizliği ortak bir patolojik ağ içinde birleşmekte; kalıcı epitel senesensi ile fibroblast aktivasyonu birbirini karşılıklı olarak güçlendirmektedir3. Bu karmaşık moleküler ağın çözümlenmesinde, senesensle ilişkili hücre durumlarının sınıflandırılmasında ve yeni senolitik veya antifibrotik ilaç adaylarının tasarlanmasında yapay zekâ ve makine öğrenmesi yaklaşımları giderek artan bir rol oynamaktadır4,5,6.
Bu derlemede; hücresel senesens ve fibrozis kesişimindeki biyolojik mekanizmalar, ortak moleküler yolaklar, yapay zekâ destekli hedef ve molekül keşfi yaklaşımları ile mevcut tedavilerin klinik çeviri düzeyi bütüncül bir çerçevede ele alınmaktadır.
- Senesensin Kavramsal Çerçevesi ve Doku Üzerindeki Etkileri
2.1 Tanım, Belirteçler ve Heterojenlik
Hücresel senesens tek bir evrensel biyobelirteçle tanımlanamayan; kalıcı hücre döngüsü duraklaması, makromoleküler hasar birikimi, kromatin yeniden yapılanması, metabolik değişimler ve salgısal aktivitenin birlikte değerlendirilmesini gerektiren çok bileşenli bir hücre durumudur7,8. Bu fenotipik özellikler tekdüze olmayıp hücre tipine, doku mikroçevresine ve senesensi tetikleyen birincil stres uyaranına göre belirgin heterojenlik göstermektedir8. Tek hücreli transkriptom verilerinden hücre tipine özgü senesens imzaları çıkaran SenePy algoritması, senesensle ilişkili gen ekspresyon programlarının hücre tipleri ve türler arasında büyük ölçüde ayrıştığını ortaya koymakta ve hücreye özgü puanlama sistemlerinin evrensel tekil gen imzalarına kıyasla deneysel veri kümelerinde senesent hücreleri ayrıştırmada daha yüksek saptama duyarlılığı sağlayabileceğini göstermektedir4. Bununla birlikte, tek başına transkriptomik skorlama sistemleri; hücre döngüsü duraklaması, DNA hasar yanıtı ve salgısal aktiviteye ilişkin fonksiyonel doğrulama ölçümlerinin yerini tutmamaktadır4,9,10. Nitekim Cellular Senescence Network (SenNet) ve Minimal Information on Cellular Senescence Experimentation (MICSE) konsensüs kılavuzları, farklı hücresel stres durumlarıyla örtüşen özellikleri ayrıştırmak amacıyla hücre ve doku bağlamına uyarlanmış çoklu doğrulama panellerinin kullanımını standartlaştırmaktadır9,10. Dolayısıyla senesens tespitinde kullanılan makine öğrenmesi modellerinin gerçek biyolojik geçerliliği, yalnızca algoritmik sınıflandırma performansına değil, eğitim kümesinde kullanılan referans biyobelirteç tanımlarının doğruluğuna dayanmaktadır9,10.
2.2 SASP ve Kronik İnflamasyon
Senesent hücrelerin salgıladığı proinflamatuvar sitokinler, kemokinler, büyüme faktörleri ve matriks parçalayıcı proteazlardan oluşan SASP, hücre içi antiapoptotik sağkalım ağlarıyla eşgüdümlü olarak çalışmakta ve patolojik senesent hücrelerin aralıklı (hit-and-run yaklaşımıyla) hedeflenmesi kronik dejeneratif hastalıklar için temel bir terapötik strateji oluşturmaktadır11. Pulmoner fibrozis patogenezinde kalıcı senesent hücre birikimi; SASP aracılı kronik inflamasyon, alveoler epitel rejenerasyon yetersizliği ve miyofibroblast aktivasyonu üzerinden doku yıkımını sürdürmektedir12. IPF hastalarından izole edilen akciğer fibroblastlarının senesent sekretomu doğrudan profibrotik aktivite sergilerken, senesent alveoler epitel hücrelerinin farmakolojik olarak temizlendiği ex vivo üç boyutlu akciğer doku kültürlerinde SASP bileşenleri ve hücre dışı matriks (ECM) birikimi belirgin düzeyde gerilemektedir13,14. Bununla birlikte, senesent hücre yükünün veya SASP aktivitesinin baskılanması farklı preklinik hastalık modellerinde doku işlevlerini iyileştirse de kullanılan senoterapötik ajan sınıflarının seçiciliği ve doku tipine göre elde edilen yanıt büyüklükleri homojen bir dağılım göstermemektedir15.
2.3 Senoterapötik Müdahalelerin Kavramsal Ayrımı
Senesensin farmakolojik olarak hedeflenmesinde hücresel eliminasyon ile fenotipik modülasyon mekanistik olarak birbirinden ayrılmaktadır15. Senolitik stratejiler, antiapoptotik sağkalım yolaklarını baskılayarak senesent hücrelerin seçici apoptozunu sağlarken; senomorfik yaklaşımlar hücre ölümünü tetiklemeksizin nükleer faktör kappa B (NF-κB), rapamisinin memeli hedefi (mTOR) veya Janus kinaz/sinyal dönüştürücü ve transkripsiyon aktivatörü (JAK/STAT) gibi sinyal yolakları üzerinden SASP üretimini ve zararlı hücresel işlevleri baskılamaktadır15. Bu mekanistik ayrım doğrultusunda, terapötik bir müdahale sonrasında doku veya dolaşımdaki SASP belirteçlerinin azalması tek başına senoliz kanıtı oluşturmamakta; benzer şekilde gözlenen antifibrotik yanıtlar da doğrudan senesent hücre eliminasyonuyla eşdeğer tutulamamaktadır15.
- Doku İyileşmesinin Bozulması ve Fibrozis Patofizyolojisi
3.1 Alveoler Epitel Hücre Durumları ve Senesens
Akciğer hasarı sonrasında alveoler tip 2 (AT2) epitel hücrelerinin alveoler tip 1 (AT1) hücrelere farklılaşması sırasında ortaya çıkan rejeneratif geçiş hücre durumları; DNA hasar yanıtı, hücre döngüsü duraklaması ve senesensle örtüşen transkripsiyonel programlar sergilemekte ve insan fibrotik akciğer dokularında normal farklılaşmasını tamamlayamadan kalıcı hâle gelmektedir16. Benzer şekilde, fizyolojik alveoler rejenerasyon sürecinde geçici olarak ortaya çıkan Krt8 pozitif alveoler farklılaşma ara hücreleri (Krt8+ ADI), insan akciğer fibrozisinde anormal biçimde birikerek doku onarımının kilitlenmesine yol açmaktadır17.
Sftpc C121G mutasyonlu fare modeli, bleomisin hasar modeli, hasta kökenli indüklenmiş pluripotent kök hücre (iPSC) kaynaklı AT2 hücreleri ve epitel–mezenkim organoid ortak kültürlerinde, bu anormal ara durumdaki AT2 hücrelerinin kanonik AT2 kimlik genlerini kaybettiği; buna karşın KRT8, KRT19 ve CLDN4 gibi geçiş durumu belirteçleri ile TGF-β, bağ dokusu büyüme faktörü (CTGF) ve fibronektin ekspresyonunu artırdığı saptanmıştır18. Söz konusu patolojik epitel hücreleri, insan IPF akciğerlerinde tanımlanan anormal bazaloid hücrelerle yüksek transkriptomik örtüşme göstermektedir18.
Anormal ara durumdaki AT2 hücreleriyle ortak kültürlenen veya bu hücrelerin koşullandırılmış ortamına maruz bırakılan sağlıklı akciğer fibroblastlarında, Cthrc1 ve Col1a1 gibi patolojik miyofibroblast genlerinin ifadesi doğrudan uyarılmaktadır18. Epitel kaynaklı koşullandırılmış ortamda yükselen aktif TGF-β1 sinyali, aktivin reseptör benzeri kinaz 5 (ALK5) inhibisyonuyla bloke edildiğinde fibroblastlardaki profibrotik gen yanıtı güçlü biçimde baskılanmakta; CTGF inhibisyonu ise daha kısmi bir azalma sağlamaktadır18. Karşılıklı olarak, fibrotik fibroblastların varlığı da alveoler epiteldeki anormal geçiş programını pekiştirerek çift yönlü bir patolojik döngü kurmaktadır18. Nitekim AT2 hücrelerine özgü koşullu genetik müdahaleyle (Sin3a kaybı üzerinden) p53 bağımlı epitel senesensinin doğrudan tetiklendiği in vivo modellerde, ek bir dış hasar uyaranı olmaksızın ilerleyici pulmoner fibrozis gelişmekte ve bu senesent epitel imzası insan fibrotik akciğerlerindeki AT2 hücrelerinin tek hücreli transkriptom profilleriyle belirgin düzeyde örtüşmektedir19.
3.2 Senesensin Koruyucu ve Zararlı Rolleri
Hücresel senesens, fibrotik süreçlerde doku ve hücre tipine bağlı olarak karşıt işlevler üstlenebilmektedir14,20,21. Karaciğer hasarı modellerinde, ECM üreten aktive hepatik stellat hücrelerin senesense girmesi hücre proliferasyonunu durdurmakta, kollajen sentez programını baskılamakta ve doğal öldürücü (NK) hücreler aracılığıyla immün temizlenmeyi hızlandırarak karaciğer fibrozisini sınırlandırmaktadır20.
Akciğer dokusunda ise bazal membranla ilişkili rejeneratif nişin bileşeni olan p16 (p16INK4a) pozitif mezenkimal hücrelerin belirli alt grupları, doku hasarı ve inflamatuvar sinyallere yanıt olarak hava yolu epitel kök hücre proliferasyonunu ve epitel bariyer onarımını destekleyen parakrin faktörler üretmektedir21. Bununla birlikte, p16 eksprese eden bu stromal hücre popülasyonu fonksiyonel açıdan heterojen olup tamamı klasik, geri dönüşümsüz ve patolojik SASP üreten kalıcı senesent hücre niteliği taşımamaktadır21. Diğer taraftan, bleomisin ile indüklenen pulmoner fibrozis modelinde patolojik senesent hücrelerin genetik olarak (INK-ATTAC modeliyle) veya dasatinib ve quercetin (D+Q) kombinasyonuyla erken evrede temizlenmesi, akciğer kompliyansını ve fiziksel egzersiz kapasitesini iyileştirmekte; ancak yerleşik histolojik fibrozis skorlarında aynı düzeyde gerileme sağlamamaktadır14.
- Yaşlanma ve Fibrozis Kesişiminde Ortak Moleküler Yolaklar
Hücresel senesens ile fibrotik yeniden şekillenme arasındaki ortak moleküler ağlar; sitozolik DNA algılama, parakrin sitokin sinyalleşmesi, translasyonel yeniden programlanma, mitokondriyal kalite kontrolü ve antiapoptotik sağkalım eksenlerinde kesişmektedir3,22,23,24,25,26,27,28,29. Bu süreçlerin IPF patogenezindeki hücreler arası etkileşim mimarisi Şekil 1’de özetlenmiştir3.
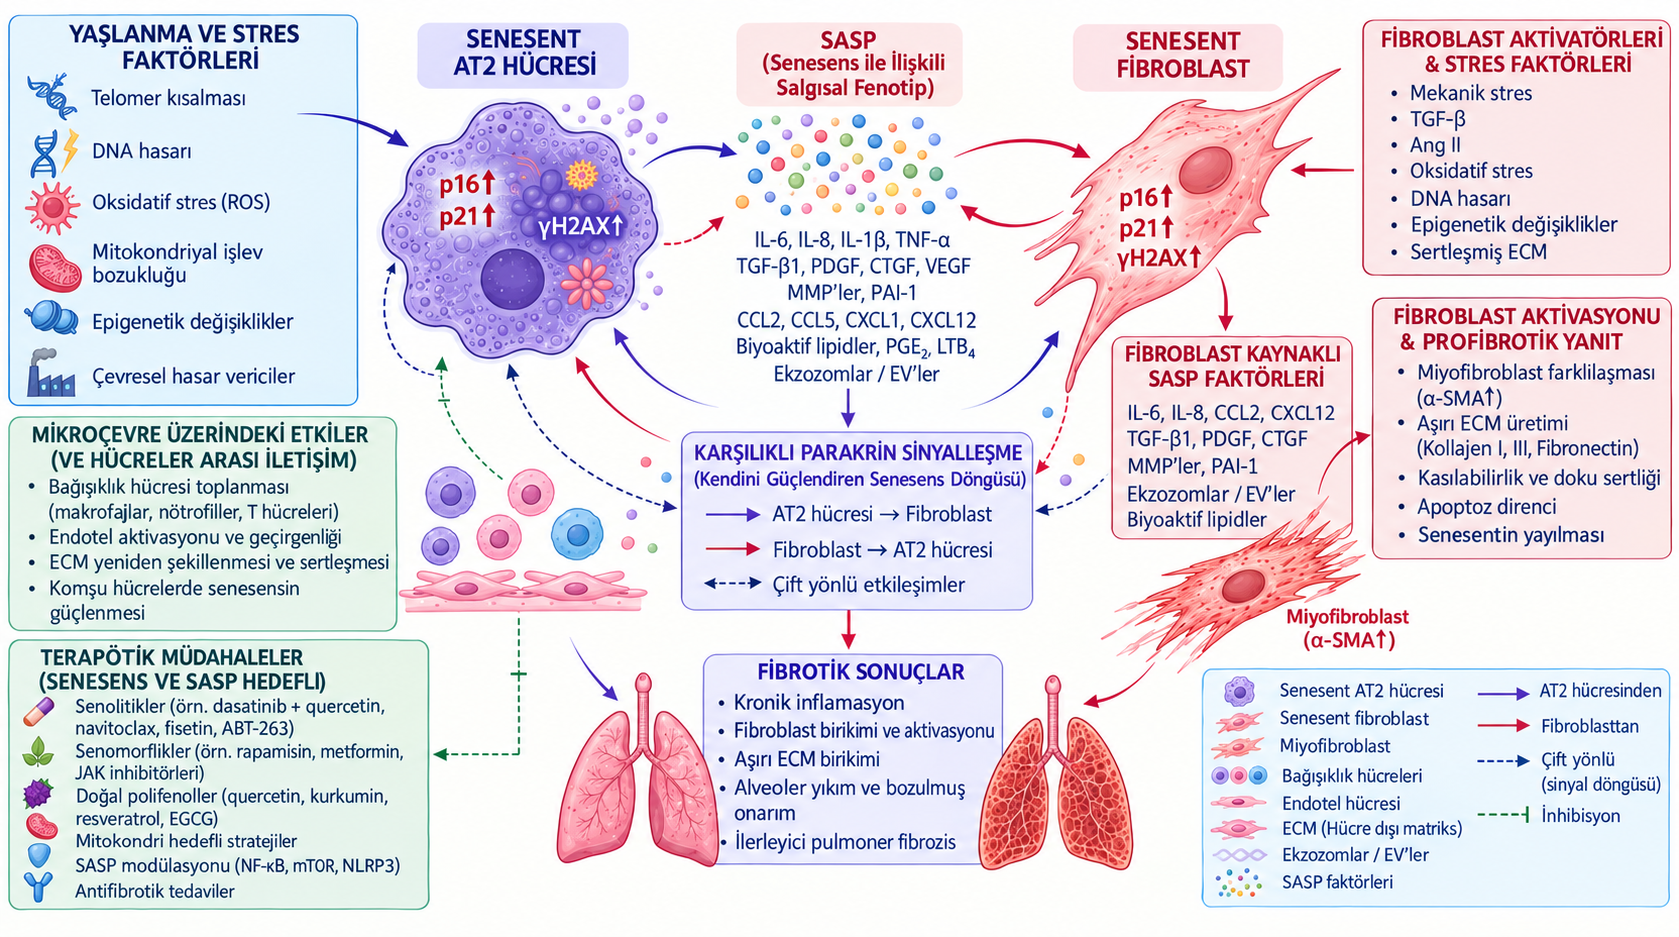
Şekil 1. İdiyopatik pulmoner fibroziste hücresel senesens ile fibrotik yeniden şekillenmeyi birbirine bağlayan moleküler yolaklar ve senesent hücreler arası etkileşim ağı3. Yönlü oklar sinyal etkileşimlerinin yönünü ve senesens ile ilişkili patolojik süreçlerin ilerleyişini göstermektedir. α-SMA: Alfa-düz kas aktini; Ang II: Anjiyotensin II; AT2: Alveoler tip 2 epitel hücresi; CCL: C-C motifli kemokin ligandı; CTGF: Bağ dokusu büyüme faktörü; CXCL: C-X-C motifli kemokin ligandı; ECM: Hücre dışı matriks; EGCG: Epigallokateşin gallat; EV: Hücre dışı vezikül; γH2AX: Fosforile histon H2AX; IL: İnterlökin; JAK: Janus kinaz; LTB₄: Lökotrien B4; MMP: Matriks metalloproteinaz; mTOR: Rapamisinin memeli hedefi; NF-κB: Nükleer faktör kappa B; NLRP3: NOD-, LRR- ve pirin alanı içeren protein 3; PAI-1: Plazminojen aktivatör inhibitörü-1; PDGF: Trombosit kaynaklı büyüme faktörü; PGE₂: Prostaglandin E2; ROS: Reaktif oksijen türleri; SASP: Senesens ile ilişkili salgısal fenotip; TGF-β: Dönüştürücü büyüme faktörü-beta; TNF-α: Tümör nekroz faktörü-alfa; VEGF: Vasküler endotelyal büyüme faktörü3.
4.1 cGAS–STING Ekseni
Sitozolik çift sarmallı DNA algılama mekanizması olan siklik GMP-AMP sentaz–interferon genleri uyarıcısı (cGAS–STING) yolağı, senesens ve fibrozisin kesiştiği merkezi sinyal eksenlerinden biri olmakla birlikte aktive olduğu hücre tipine göre zıt patofizyolojik çıktılar üretmektedir22,23. Akciğer ve böbrek fibrozisi modellerinde hasarlı parankimal ve epitel hücrelerde aktive olan STING, kanonik tip I interferon yolağından bağımsız biçimde endoplazmik retikulum üzerindeki protein kinaz R benzeri endoplazmik retikulum kinazı (PERK) ve ökaryotik başlatma faktörü 2 alfa (eIF2α) eksenini uyararak senesens ve inflamasyon odaklı bir translasyonel programı başlatmakta ve organ fibrozisini hızlandırmaktadır22. Buna karşılık, karaciğer fibrozisi modellerinde aktive hepatik stellat hücrelerdeki cGAS–STING sinyali, interferon düzenleyici faktör 3 (IRF3)–retinoblastom proteini (RB) etkileşimi üzerinden stellat hücre senesensini tetikleyerek miyofibroblastik çoğalmayı durdurmakta ve karaciğer fibrozisini baskılamaktadır23. Epitel hasarına bağlı profibrotik SASP üretimi ile aktive stellat hücre proliferasyonunun durdurulması birbirine zıt doku sonuçları doğurduğundan, cGAS–STING ekseninin sistemik olarak tek yönlü hedeflenmesi yerine hücre tipine ve aşağı akım sinyal koluna (STING–PERK–eIF2α gibi) özgü seçici modülasyon stratejileri gerekmektedir22,23.
4.2 İnterlökin-11 Sinyal Yolağı
İnterlökin-6 (IL-6) sitokin ailesinin bir üyesi olan interlökin-11 (IL-11), insan akciğer fibroblastlarında ve in vivo pulmoner fibrozis modellerinde hücre dışı sinyalle düzenlenen kinaz (ERK) bağımlı post-transkripsiyonel mekanizmalar üzerinden fibroblastların miyofibroblastlara dönüşümünü ve ECM protein sentezini uyarmaktadır; IL-11 sinyalinin genetik delesyonu veya nötralizan antikorlarla blokajı ise akciğer fibrozisini geriletmektedir24. Organ fibrozisindeki bu rolüne paralel olarak, doğal yaşlanma sürecinde yukarı regüle olan IL-11–ERK–rapamisinin memeli hedefi kompleks 1 (mTORC1) ekseni çoklu dokularda hücresel senesens belirteçlerini, kronik inflamasyonu ve yaşa bağlı metabolik düşüşü hızlandırmakta; yaşlı farelerde IL-11 sinyalinin genetik veya farmakolojik inhibisyonu sağlık süresini iyileştirerek medyan yaşam süresini her iki cinsiyette de belirgin biçimde uzatmaktadır25. Hem akciğerde miyofibroblast aktivasyonunu hem de sistemik yaşlanmada senesent hücre birikimini ve metabolik bozulmayı yönlendiren bu ortak mekanizma, IL-11 eksenini yaşlanma ile ilişkili fibrotik hastalıklar için öncelikli bir terapötik hedef konumuna getirmektedir24,25.
4.3 Mitokondriyal Kalite Kontrol ve Epitel Koruyucu Faktörler
Mitokondriyal homeostazın ve hücresel stres yanıtlarının korunması, hem fibroblast hem de alveoler epitel kompartmanlarında senesens ve fibrozis gelişimini baskılayan temel bir denetim mekanizmasıdır26,27,28. İnsan akciğer fibroblastlarında ve deneysel akciğer fibrozisi modellerinde kemik morfogenetik protein 4 (BMP4), bozulmuş mitofajiyi ve mitokondriyal kalite kontrolünü yeniden sağlayarak TGF-β1 kaynaklı fibroblast senesensini, miyofibroblast farklılaşmasını ve ECM birikimini azaltmaktadır26. Benzer şekilde, yaşlı farelerde gelişen kalıcı akciğer fibrozisi modelinde mitokondriyal deasetilaz sirtuin 3 (SIRT3) gen ifadesinin hava yolu aracılı gen aktarımıyla yeniden kazandırılması, senesent miyofibroblastların apoptoz duyarlılığını geri yüklemekte ve yerleşik fibrozisin çözülme kapasitesini artırmaktadır27. Alveoler epitel tarafında ise IPF dokularındaki AT2 hücrelerinde azalan insülin benzeri büyüme faktörü bağlayıcı protein 2 (IGFBP2) düzeyleri, peroksizom proliferatör ile aktive olan reseptör alfa (PPARα)–p21 ekseni üzerinden epitel senesensini hızlandırmakta; IGFBP2 ekspresyonunun yeniden sağlanması ise AT2 senesensini, SASP üretimini ve parakrin fibrotik sinyalleşmeyi baskılamaktadır28. Fibroblastlarda mitofajiyi destekleyerek senesensi baskılayan BMP4 ve epitel hücrelerinde senesens gelişimini önleyen IGFBP2 yaklaşımları ile senesent miyofibroblastların endojen apoptoz duyarlılığını geri kazandıran SIRT3 restorasyonu, doğrudan farmakolojik senolitik ajan uygulanmaksızın mitokondriyal ve hücresel homeostazın yeniden tesis edilmesiyle antifibrotik yanıt sağlanabildiğini göstermektedir; ancak, büyüme faktörlerinin pleiotropik etkileri ve viral/genetik aktarım vektörlerinin akciğer dokusundaki hedefli dağılım ve uzun dönem güvenlilik gereksinimleri klinik çeviri aşamasındaki başlıca farmakolojik parametrelerdir26,27,28.
4.4 Apoptoz Direnci ve Sağkalım Bağımlılıkları
Senesent hücreler, kronik DNA hasarı ve SASP kaynaklı proapoptotik stres sinyallerine rağmen antiapoptotik sağkalım yolaklarını yukarı regüle ederek programlı hücre ölümünden kaçmaktadır11,29. BCL-2 ailesi proteinleri başta olmak üzere antiapoptotik sağkalım ağları ve bağlama bağlı olarak p53–p21 ekseni üzerinden düzenlenen bu apoptoz direnci, senolitik ajanların geliştirilmesinde temel moleküler hedefleri oluşturmaktadır5,29. Bununla birlikte, senesent hücrelerin sağkalım bağımlılıkları tekdüze olmayıp hücre tipine, doku kökenine ve senesensi tetikleyen birincil uyarana göre değişkenlik göstermektedir29. Dolayısıyla tek bir antiapoptotik hedefin farmakolojik olarak baskılanması tüm senesent hücre popülasyonlarında aynı etkinliği göstermemekte; ayrıca bu yolakların sağlıklı hücrelerdeki fizyolojik rolleri nedeniyle hedefe bağlı doz sınırlayıcı toksisite (veya hedef dışı yan etki) riski ile terapötik pencere darlığı senolitik tasarımında önemli birer kısıtlılık olarak öne çıkmaktadır29.
- Yapay Zekâ Destekli Hedef Belirleme ve Molekül Tasarımı
5.1 Biyomoleküler Yapı ve Etkileşim Tahmini: AlphaFold 3
Yapı tabanlı ilaç tasarımında hedef proteinlerin diğer proteinler, nükleik asitler, iyonlar ve küçük moleküllerle oluşturduğu biyomoleküler komplekslerin üç boyutlu mimarisini birlikte tahmin edebilen difüzyon temelli derin öğrenme modeli AlphaFold 3, deneysel yapı verileriyle yapılan karşılaştırmalarda geleneksel kenetleme (docking) ve homoloji yaklaşımlarına kıyasla çoklu etkileşim sınıflarında yüksek tahmin doğruluğu sağlamaktadır30. Senesens ve fibrozis yolaklarında görev yapan hedef protein komplekslerinin yapısal olarak modellenmesinde ve küçük molekül bağlanma pozlarına ilişkin etkileşim hipotezlerinin üretilmesinde bu tür derin öğrenme mimarileri önemli bir hesaplamalı altyapı oluşturmaktadır30. Bununla birlikte, in silico düzeyde yüksek güven skoruyla tahmin edilen bir protein–ligand kompleks yapısı; biyofiziksel bağlanma afinitesini, hücresel ortamda hedefe tutunma kapasitesini, emilim, dağılım, metabolizma, atılım ve toksisite (ADMET) profilini, senolitik seçiciliği veya antifibrotik etkinliği tek başına belirleyemediğinden hesaplamalı yapı tahminlerinin biyokimyasal ve hücresel analizlerle doğrulanması gerekmektedir30.
5.2 Senolitik Adayların Makine Öğrenmesi ile Keşfi
Makine öğrenmesi tabanlı sanal tarama algoritmaları, bilinen senolitik aktivite verileri üzerinden yapı–aktivite ilişkilerini öğrenerek geniş kimyasal kütüphanelerde yeni aday moleküllerin belirlenmesini sağlamaktadır5,31. Literatür kaynaklı senolitik aktivite verileriyle eğitilen sınıflandırma modelleri aracılığıyla ginkgetin, oleandrin ve periplocin bileşiklerinin güçlü senolitik etkinlik sergilediği belirlenmiştir31. Standartlaştırılmış 2.352 molekülden oluşan deneysel tarama verisiyle eğitilen mesaj iletimli grafik sinir ağları (message-passing graph neural networks) ise 800.000’den fazla bileşiği kapsayan kimyasal uzayı tarayarak mevcut senolitiklerden yapısal olarak ayrışan üç yeni küçük molekül tanımlamaktadır5. Bu aday moleküller, in vitro düzeyde B-hücreli lenfoma 2 (BCL-2) aracılı antiapoptotik yolağı baskılayarak seçici senoliz sağlamakta; seçilen öncü bileşik (BRD-K56819078) ise yaşlı fare modellerinde böbrek dokusundaki senesent hücre yükünü azaltmaktadır5.
Hesaplamalı senolitik keşfinde kullanılan eğitim verisinin niteliği, modelin kimyasal genelleme kapasitesini doğrudan belirlemektedir: literatürden derlenen veri kümeleri deneysel protokol farklılıklarına bağlı heterojenlik barındırabilirken, tek merkezli yüksek hacimli tarama verileri deneysel gürültüyü sınırlandırarak derin öğrenme modellerinin geniş ve yapısal çeşitliliği yüksek kimyasal uzaylarda eğitilmesine olanak tanımaktadır5,31. Bununla birlikte, eğitim kümesindeki mevcut aktif bileşiklere yapısal yakınlık gösteren kardiyak glikozit türevleri (oleandrin ve periplocin gibi) in vitro düzeyde düşük konsantrasyonlarda senolitik aktivite gösterse de dar terapötik indeksleri ve sistemik kardiyotoksisite riskleri nedeniyle klinik uygulamada doz sınırlayıcı özellik taşımaktadır31. Benzer şekilde, in vitro taramalarda kullanılan replikatif veya kimyasal olarak indüklenmiş senesens modelleri fibrotik dokulardaki karmaşık in vivo senesens mikroçevresini tam olarak yansıtmamakta; ayrıca yalnızca BCL-2 inhibisyonuna dayanan mekanizmalar farklı antiapoptotik ağları kullanan senesent hücre alt gruplarını kapsayamamaktadır5,29.
5.3 Senesensin Makine Öğrenmesi ile Saptanması
Hücre çekirdeğinin boyut, şekil ve kromatin dokusu gibi morfolojik özelliklerini analiz eden makine öğrenmesi sınıflandırıcıları, kültür hücrelerinde ve yaşlanma ile fibrozis bağlamındaki doku kesitlerinde senesent hücrelerin yüksek verimli ve ölçeklenebilir biçimde tanımlanmasını sağlamaktadır32. Bununla birlikte, nükleer morfolojideki değişimler yalnızca senesense özgü olmayıp hücresel stres yanıtları, hücre tipi farklılıkları ve mikroskobik görüntüleme koşullarından doğrudan etkilenmektedir; bu nedenle morfolojik sınıflandırma modellerinin genellenebilirliği çoklu biyolojik belirteçlerle doğrulamaya ve bağımsız dış veri kümeleriyle kalibrasyona dayanmaktadır32.
Senesensin hesaplamalı tespitinde kullanılan yaklaşımlar, inceledikleri biyolojik katmana göre birbirini tamamlayan bilgiler üretmektedir: görüntü tabanlı algoritmalar hücresel ve nükleer morfolojiyi, SenePy gibi tek hücreli transkriptomik araçlar hücre tipine özgü moleküler ekspresyon programlarını, uzamsal transkriptomik yöntemler ise bu hücrelerin doku mikroçevresi içindeki anatomik yerleşimlerini ve komşuluk ilişkilerini ortaya koymaktadır4,32,33. Bu kapsamda geliştirilen scDOT algoritması, optimal taşıma (optimal transport) ve ekspresyon ayrıştırması (expression deconvolution) modelleri üzerinden tek hücreli RNA dizileme verilerini uzamsal transkriptomik profillerle bütünleştirerek senesent ve profibrotik hücre durumlarının doku mimarisindeki konumlarını haritalandırmaktadır33. Dolayısıyla bu hesaplamalı yöntemler birbirinin alternatifi olmaktan ziyade, heterojen senesent hücre durumlarının morfolojik, moleküler ve uzamsal düzeylerde çok katmanlı olarak doğrulanmasını sağlayan bütüncül bir analiz çerçevesi oluşturmaktadır4,32,33.
5.4 Yapay Zekâ ile Hedef Seçimi ve Klinik Aday: TNIK İnhibitörü
Omik ve ağ tabanlı hedef önceliklendirme algoritmalarının üretken ve yapı tabanlı kimya modelleriyle bütünleştirilmesi sonucunda, TRAF2 ve NCK ile etkileşen kinaz (TNIK) antifibrotik bir hedef olarak tanımlanmış ve bu hedefe yönelik küçük moleküllü inhibitör adayı INS018_055 (rentosertib) tasarlanmıştır (Şekil 2)6. Biyokimyasal inhibisyon gücü, kinom genelindeki seçiciliği ve ADMET profili optimize edilen bu molekül, preklinik fibrozis modellerinde antifibrotik etkinlik göstermekte ve sağlıklı gönüllülerdeki faz I verilerinde klinik geliştirmeye uygun farmakokinetik özellikler sergilemektedir6.
Rentosertibin klinik güvenliliği ve erken dönem etkinliği, IPF tanılı 71 hastayı kapsayan 12 haftalık, çok merkezli, çift kör, randomize ve plasebo kontrollü faz 2a klinik protokolü kapsamında günde bir kez 30 mg (n=18), günde iki kez 30 mg (n=18), günde bir kez 60 mg (n=18) ve plasebo (n=17) doz rejimleriyle sınanmıştır34. Birincil sonlanım noktası güvenlik ve tolerabilite olan bu protokolde, ikincil etkinlik ölçütü olarak zorlu vital kapasite (FVC) değişimleri izlenmiştir34. On ikinci hafta sonunda, günde bir kez 60 mg rentosertib uygulanan doz kolunda başlangıca göre ortalama FVC değişimi +98,4 mL düzeyine ulaşırken plasebo kolunda −20,3 mL gerileme kaydedilmiştir34. Bununla birlikte, 12 haftalık izlem tamamlanmadan 16 hastada tedavi kesilmiş; tedaviyi bırakma olgularının 12’si advers olaylara, bu advers olayların yedisi ise karaciğer hasarı veya karaciğer işlev bozukluğuna bağlı olarak gelişmiştir34.
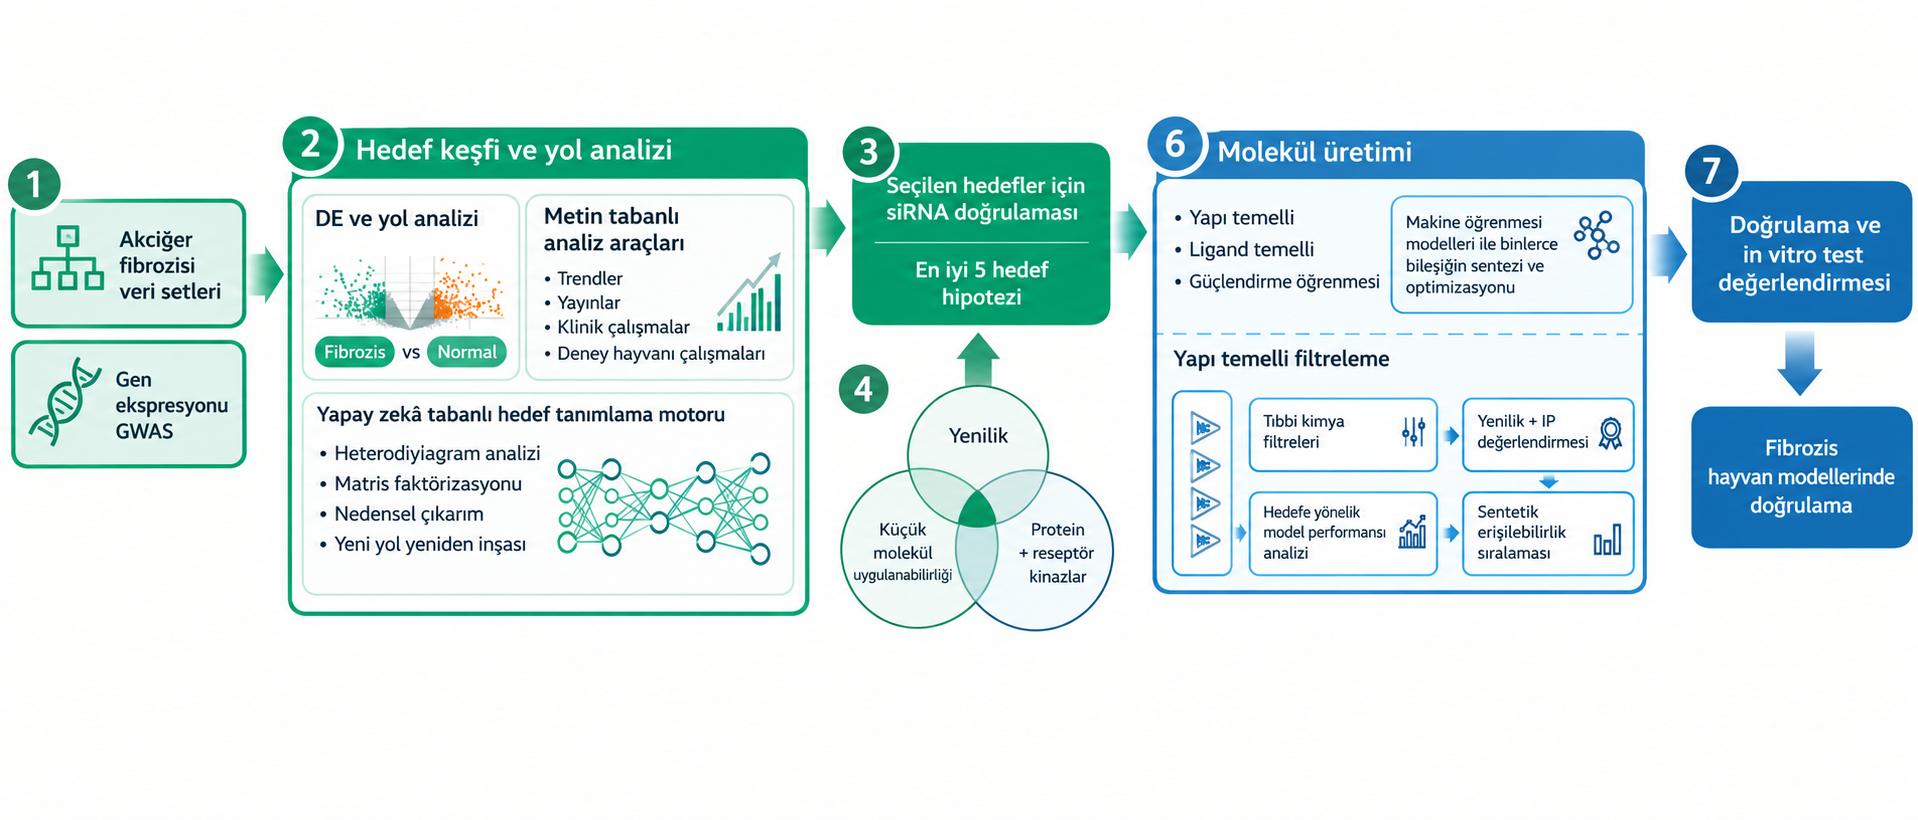
Şekil 2. Akciğer fibrozisinde yapay zekâ destekli hedef keşfi, molekül tasarımı ve preklinik doğrulama iş akışı6. Akciğer fibrozisine ilişkin gen ekspresyonu ve genetik verilerin yol analizi, metin tabanlı analizler ve yapay zekâ destekli yöntemlerle değerlendirilmesi; aday hedeflerin seçilmesi ve siRNA ile doğrulanması gösterilmiştir. Ayrıca yapı ve ligand temelli yaklaşımlarla aday moleküllerin üretilmesi, filtrelenmesi ve optimize edilmesi ile in vitro deneylerde ve fibrozis hayvan modellerinde doğrulanması özetlenmiştir. DE: Diferansiyel gen ekspresyonu; GWAS: Genom boyu ilişkilendirme çalışması; IP: Fikrî mülkiyet; siRNA: Küçük müdahaleci RNA. Ren ve arkadaşlarının çalışmasındaki Şekil 1a’nın ilgili bölümlerinden uyarlanmıştır6.
5.5 Yöntemsel Kalite ve Yanlılık Riski
Hücresel senesens araştırmalarında geliştirilen yapay zekâ ve makine öğrenmesi modellerinin metodolojik güvenilirliği, Tahmin Modeli Yanlılık Riski Değerlendirme Aracı-Yapay Zekâ (Prediction model Risk Of Bias Assessment Tool + AI, PROBAST+AI) ve Bireysel Prognoz veya Tanı İçin Çok Değişkenli Tahmin Modelinin Şeffaf Raporlanması-Yapay Zekâ (Transparent Reporting of a multivariable prediction model for Individual Prognosis Or Diagnosis + AI, TRIPOD+AI) kılavuzları temelinde belirlenmektedir35,36,37. Bu çerçevede PROBAST+AI; veri seçimi, model geliştirme sürecinin kalitesi, doğrulama aşamalarındaki yanlılık riski ve klinik uygulanabilirlik ölçütlerini değerlendirirken, TRIPOD+AI algoritmik iş akışlarının şeffaf ve eksiksiz raporlanma standartlarını tanımlamaktadır36,37. Nitekim 2019–2025 yılları arasında senesens alanında geliştirilen 18 yapay zekâ modelinin %83,33 ile %99,79 arasında değişen yüksek sınıflandırma doğruluklarına ulaşmasına karşın, bu modellerin büyük çoğunluğunda (15/18) eğitim ve test kümeleri arasında veri sızıntısı, bağımsız dış doğrulama eksikliği ve açık kaynaklı kod paylaşım yetersizliği kaynaklı yüksek yanlılık riski bulunmaktadır35.
Hesaplamalı modellerin ardından yürütülen in vivo doğrulama çalışmalarında ise deneysel tasarım kalitesi, Laboratuvar Hayvanı Deneyleri İçin Sistematik İnceleme Merkezi (Systematic Review Centre for Laboratory animal Experimentation, SYRCLE) yanlılık riski aracı üzerinden izlenmektedir38. SYRCLE protokolü; grup tahsisinde randomizasyon, araştırmacı körlemesi ve sonlanım değerlendirmesindeki nesnellik gibi iç geçerlilik parametrelerini standartlaştırmaktadır38. Bununla birlikte, bu tür metodolojik değerlendirme araçları deneysel tasarımın iç geçerliliğini ve yanlılık riskini ölçmekte; kullanılan hayvan modelinin insan fibrozis patofizyolojisini temsil etme kapasitesini (dış geçerlilik ve klinik çeviri uygunluğunu) doğrudan belirleyememektedir38.
- Klinik Çeviri ve Güncel Yaklaşımlar
6.1 Senolitik İlaçlarla Yürütülen İnsan Çalışmaları
IPF tedavisinde senolitik ajanların klinik uygulanabilirliği ilk olarak 14 hastayı kapsayan açık etiketli ve tek kollu bir pilot protokolde, aralıklı D+Q kombinasyonu ile değerlendirilmiştir39. Üç haftalık uygulama süreci sonunda ilaç rejimi yüksek tamamlanma oranı göstermiş ve 6 dakikalık yürüme mesafesi ile yürüme hızı gibi fiziksel fonksiyon parametrelerinde artış kaydedilmiş; buna karşın FVC başta olmak üzere solunum fonksiyon testlerinde anlamlı bir değişim saptanmamış, dolaşımdaki SASP belirteçlerine ilişkin değişimler ise kesin bir sonuca bağlanamamıştır39. Kontrol kolunun bulunmaması, kısıtlı örneklem büyüklüğü ve kısa izlem süresi nedeniyle fiziksel performans ölçütlerindeki bu değişimler, spirometrik veya yapısal antifibrotik etkinlikten ziyade erken dönem uygulanabilirlik verisi niteliği taşımaktadır39.
Aralıklı D+Q rejiminin güvenlilik ve tolerabilite profili, devamında yürütülen faz I, tek merkezli, tek kör, randomize ve plasebo kontrollü pilot çalışmada 12 IPF hastası (her kolda n=6) üzerinde sınanmıştır40. Üç haftalık tedavi protokolü tüm katılımcılarda tamamlanmış ve tedaviyle ilişkili ciddi advers olay gelişmemiştir; ancak hafif ve orta şiddetteki advers olay sıklığı D+Q kolunda plaseboya kıyasla daha yüksek seyretmiştir40. Birincil amacı uygulanabilirlik ve güvenlilik olan bu erken faz protokol, başlangıçtaki hasta özelliklerinin dağılımı ve sınırlı hasta sayısı bakımından klinik etkinlik veya doku düzeyinde fibrozis gerilemesini ölçmeye yönelik istatistiksel güce sahip değildir40. IPF’de yürütülen senolitik pilot protokoller ile yapay zekâ tabanlı TNIK inhibitörü faz 2a çalışmasının klinik tasarım ve sonlanım özellikleri Tablo 1’de özetlenmiştir34,39,40.
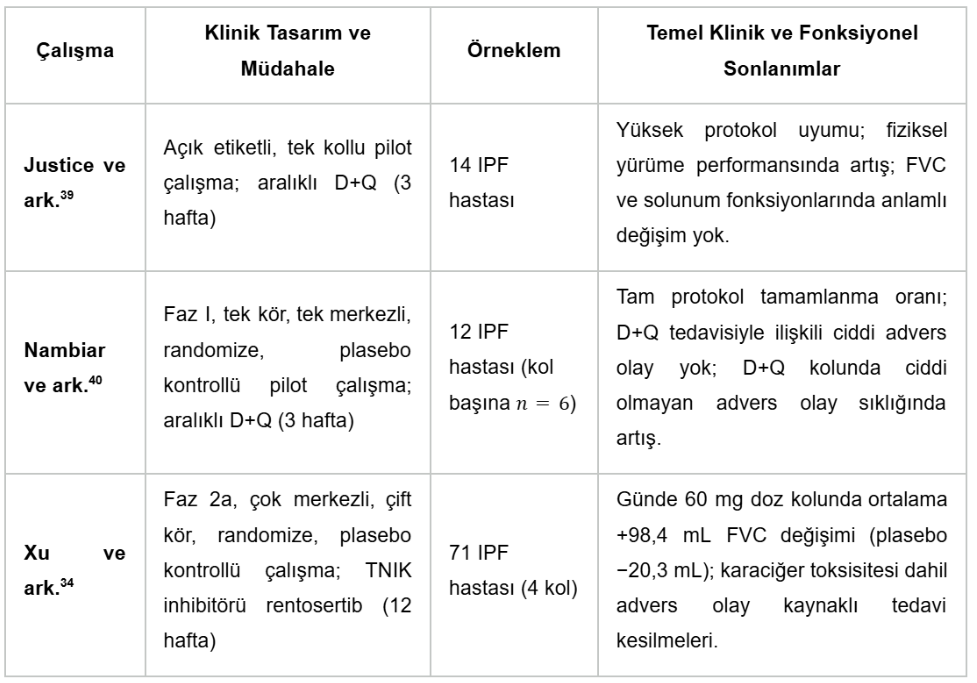
Tablo 1. IPF’de senolitik kombinasyon ve yapay zekâ destekli küçük molekül adaylarına ilişkin klinik çalışmaların tasarım ve sonlanım özellikleri34,39,40. IPF: idiyopatik pulmoner fibrozis; D+Q: dasatinib ve quercetin; FVC: Zorlu vital kapasite; TNIK: TRAF2 ve NCK ile etkileşen kinaz (TRAF2 and NCK-interacting kinase).
Klinik çalışmalara paralel olarak yürütülen preklinik araştırmalarda, hasta kaynaklı hücre analizleri ve deneysel ex vivo üç boyutlu akciğer doku kesiti modelleri ile küçük moleküllü farmakolojik inhibitörlerden immünoterapötik ajanlara uzanan senoterapötik yaklaşımlar, senesens hedeflemesinin tek bir molekül sınıfıyla sınırlı olmadığını ve hücre tipine özgü seçiciliğin terapötik indeksin genişletilmesinde belirleyici rol oynadığını ortaya koymaktadır13,41. Bununla birlikte, farklı senoterapötik sınıflar preklinik ve klinik gelişim basamaklarında farklı olgunluk düzeylerinde bulunmaktadır41. Özellikle ex vivo doku kesiti modelleri yerel parankimal yanıtları ve erken antifibrotik sinyalleri korusa da sistemik kan dolaşımı, bağışıklık hücresi göçü, karaciğer metabolizması, organlar arası farmakokinetik dağılım ve uzun dönem sistemik toksisite süreçlerini içermediğinden klinik çeviri aşamasında in vivo ve klinik doğrulama gerektirmektedir13,41.
6.2 Seçici Hedefleme Stratejileri
Hücre yüzeyindeki ürokinaz plazminojen aktivatör reseptörü (uPAR) proteini üzerinden senesent hücreleri tanıyan kimerik antijen reseptörü T (CAR-T) hücreleri, kimyasal ve diyet kaynaklı fare karaciğer fibrozisi modellerinde senesent hücre yükünü azaltmakta ve fibrotik doku mimarisinde gerileme sağlamaktadır42. uPAR hedefli CAR-T hücrelerinin terapötik etkinliği yalnızca fibrozis modelleriyle sınırlı kalmayıp yaşlanmayla ilişkili metabolik işlev bozukluğu modellerinde de tek doz uygulama sonrasında uzun süreli in vivo hücresel kalıcılık ve metabolik homeostazda iyileşme oluşturmaktadır43. Bununla birlikte, uPAR ekspresyonunun yalnızca senesent hücrelere özgü olmaması nedeniyle fizyolojik dokularda hedef dışı sitotoksisite olasılığı, sitokin salınım sendromu riski ve kalıcı hücresel immünoterapilerin uzun dönem güvenlilik profili klinik çeviri aşamasındaki temel belirleyicilerdir42,43. Benzer bir immünoterapötik yaklaşım olan ve senesent hücrelerin doğal bağışıklık sistemi tarafından tanınmasını güçlendiren kimerik peptit stratejisi ise doku hasarı, fibrozis, tümör ve fizyolojik yaşlanma modellerinde immün aracılı senolizi artırarak doku homeostazını desteklemektedir; ancak bu peptit platformunun etkinlik ve güvenlilik verileri mevcut durumda preklinik hayvan modelleriyle sınırlıdır44.
Nanoteknoloji tabanlı hedefli taşıma sistemlerinde, fukoidan nanopartiküller içine enkapsüle edilen senolitik navitoclax veya bromodomain içeren protein 4 (BRD4) parçalayıcı senomorfik bir proteoliz hedefli kimerik molekül (PROTAC) olan dBET6, P-selektin eksprese eden patolojik hücre alt gruplarına seçici olarak yönlendirilmektedir45. İnsan karaciğer ve akciğer fibrozisi doku kesitlerinin yanı sıra karbon tetraklorür (CCl4) kaynaklı karaciğer ve bleomisin kaynaklı akciğer fibrozisi modellerinde bu hedefli nanopartikül taşıma sistemi, serbest ilaç formülasyonlarına kıyasla sistemik toksisiteyi sınırlandırarak terapötik indeksi genişletmekte ve kollajen birikimini azaltmaktadır45. Bu taşıyıcı sistemde birincil hücresel hedef, senesens benzeri özellikler sergileyen profibrotik makrofaj alt grupları olup senolitik eliminasyon ile senomorfik transkripsiyonel baskılama birbirini tamamlayan mekanizmalar üzerinden antifibrotik etki göstermektedir45. Buna karşın, P-selektin ekspresyonunun aktif endotel ve trombositler gibi senesent olmayan kompartmanlarda da bulunması, hedefleme özgüllüğünü ve biyodağılım seçiciliğini sınırlandıran başlıca biyolojik faktördür45. Bütüncül olarak bu immünoterapötik ve nanoteknolojik yaklaşımlar, de novo küçük molekül keşfinden farklı olarak mevcut farmakolojik ajanların veya sitotoksik bağışıklık elemanlarının yüzey antijenleri aracılığıyla doğrudan patolojik senesent hücre alt gruplarına yönlendirilmesini sağlamaktadır42,43,44,45.
- Kanıt Sınırlılıkları ve Araştırma Boşlukları
Hücresel yaşlanma ve fibrozis kesişimindeki terapötik araştırmalarda dört temel biyolojik ve yöntemsel sınırlılık öne çıkmaktadır. Birincisi, senesensin bağlama bağımlı çift yönlü doğasıdır: karaciğerde stellat hücre senesensinin ECM birikimini sınırlandırması, akciğerde p16 pozitif mezenkimal hücrelerin epitel rejenerasyon nişini desteklemesi ve AT2 epitel hücre senesensinin ise doğrudan ilerleyici fibrozisi tetiklemesi, tüm senesent hücreleri ayrım gözetmeksizin ortadan kaldıran tek tip bir senolitik müdahalenin doku onarımını bozabileceğini göstermektedir19,20,21,23. İkincisi, biyobelirteç özgüllüğü sorunudur: senesens durumunu tek başına tanımlayan evrensel bir moleküler belirtecin bulunmaması, onarım sürecindeki geçişken epitel hücre durumlarının senesensle örtüşen transkripsiyonel programlar sergilemesi ve nükleer morfoloji değişimlerinin genel hücresel stres yanıtlarıyla kesişmesi, makine öğrenmesi modellerinin eğitiminde kullanılan referans etiketlerde sınıflandırma belirsizliği yaratmaktadır7,16,17,32. Üçüncüsü, preklinik hastalık modellerinin temsil kapasitesidir: akut bleomisin hasarı modeli, koşullu genetik delesyon modelleri, in vitro kimyasal/replikatif indüklenmiş senesens sistemleri ve sistemik dolaşımdan yoksun ex vivo doku kesitleri, insan IPF patogenezinin yıllar içinde gelişen kronik, geri dönüşümsüz ve uzamsal olarak heterojen doğasını tam olarak yansıtmamaktadır5,13,14,19. Dördüncüsü ise klinik çeviri ve metodolojik doğrulama boşluğudur: IPF’de yürütülen mevcut senolitik insan çalışmaları erken faz uygulanabilirlik ve güvenlilik düzeyiyle sınırlı kalmakta, yapay zekâ tabanlı TNIK inhibitörü faz 2a düzeyinde erken spirometrik sinyal üretirken hepatotoksisite kaynaklı doz kısıtlılıkları barındırmakta ve yüzey antijeni hedefli immünoterapötik/nanoteknolojik stratejiler henüz preklinik gelişim evresinde bulunmaktadır34,39,40,42,43,44,45. Buna ek olarak, senesens odaklı yapay zekâ modellerinde eğitim-test veri sızıntısı ve bağımsız dış doğrulama eksikliğine bağlı yüksek yanlılık riskinin yaygın olması, hesaplamalı öngörülerin klinik güvenilirliğini kısıtlamaktadır35. Yapay zekâ destekli molekül tasarımının geleneksel ilaç keşif süreçlerine kıyasla klinik başarı oranını ne ölçüde artırdığının ve gözlenen antifibrotik yanıtların doğrudan senolizden mi yoksa senesens dışı kinaz/sinyal inhibisyonundan mı kaynaklandığının belirlenmesi, gelecekteki kontrollü araştırmaların yanıtlaması gereken temel sorulardır6,34,35.
- Sonuç
Hücresel senesens ile fibrozis arasındaki patofizyolojik etkileşim dokuya, hücre tipine ve hasar evresine göre bağlama bağımlı bir seyir izlemekte; AT2 epitel hücrelerinin kalıcı senesensi akciğer fibrozisinin ilerlemesini sürdürürken, belirli mezenkimal ve stellat hücre alt gruplarındaki akut senesens doku onarımını veya fibrozisin sınırlandırılmasını desteklemektedir. Yaşlanma ve fibrozis kesişiminde cGAS–STING ekseni, IL-11 sinyali, mitokondriyal kalite kontrol düzenleyicileri ve antiapoptotik sağkalım ağları ortak terapötik hedefler olarak öne çıkmakta; derin öğrenme, grafik sinir ağları ve çok omikli hedef önceliklendirme algoritmaları ise yeni senolitik/antifibrotik adayların keşfinde ve senesent hücrelerin çok katmanlı tespitinde güçlü bir hesaplamalı çerçeve sunmaktadır. Bununla birlikte, mevcut klinik kanıtların erken faz çalışmalarla sınırlı olması, hedef dışı toksisite riskleri ve yapay zekâ modellerindeki metodolojik yanlılık unsurları klinik çeviride aşılması gereken başlıca engellerdir. Bu doğrultuda gelecekteki araştırmaların; hücre tipine ve hastalık evresine özgü senesens biyobelirteçlerinin tanımlanmasına, hesaplamalı modellerde bağımsız dış doğrulama standartlarının sağlanmasına ve senolitik etki ile antifibrotik etkinin mekanistik olarak ayrıştırılabildiği uzun dönemli randomize klinik tasarımlara odaklanması gerekmektedir.
Kaynakça
- López-Otín, C., Blasco, M. A., Partridge, L., Serrano, M., & Kroemer, G. (2023). Hallmarks of aging: An expanding universe. In Cell (Vol. 186, Issue 2, pp. 243–278). Elsevier B.V. https://doi.org/10.1016/j.cell.2022.11.001
- Calcinotto, A., Kohli, J., Zagato, E., Pellegrini, L., Demaria, M., & Alimonti, A. (2019). Cellular Senescence: Aging, Cancer, and Injury. Physiol Rev, 99, 1047–1078. https://doi.org/10.1152/physrev.00020.2018
- Baurzhan, M. B., Gulyayev, A. E., Absattarova, K. S., Kairgeldina, S. A., Abzaliyev, K., Izbassarova, A., Lepessova, M., & Absatarova, K. (2026). Cellular Senescence in Idiopathic Pulmonary Fibrosis: Molecular Mechanisms, Pathogenic Networks, and Emerging Therapeutic Targets. In Diseases (Vol. 14, Issue 6). Multidisciplinary Digital Publishing Institute (MDPI). https://doi.org/10.3390/diseases14060201
- Sanborn, M. A., Wang, X., Gao, S., Dai, Y., & Rehman, J. (2025). Unveiling the cell-type-specific landscape of cellular senescence through single-cell transcriptomics using SenePy. Nature Communications , 16(1). https://doi.org/10.1038/s41467-025-57047-7
- Wong, F., Omori, S., Donghia, N. M., Zheng, E. J., & Collins, J. J. (2023). Discovering small-molecule senolytics with deep neural networks. Nature Aging, 3(6), 734–750. https://doi.org/10.1038/s43587-023-00415-z
- Ren, F., Aliper, A., Chen, J., Zhao, H., Rao, S., Kuppe, C., Ozerov, I. V., Zhang, M., Witte, K., Kruse, C., Aladinskiy, V., Ivanenkov, Y., Polykovskiy, D., Fu, Y., Babin, E., Qiao, J., Liang, X., Mou, Z., Wang, H., … Zhavoronkov, A. (2025). A small-molecule TNIK inhibitor targets fibrosis in preclinical and clinical models. Nature Biotechnology, 43(1), 63–75. https://doi.org/10.1038/s41587-024-02143-0
- Gorgoulis, V., Adams, P. D., Alimonti, A., Bennett, D. C., Bischof, O., Bishop, C., Campisi, J., Collado, M., Evangelou, K., Ferbeyre, G., Gil, J., Hara, E., Krizhanovsky, V., Jurk, D., Maier, A. B., Narita, M., Niedernhofer, L., Passos, J. F., Robbins, P. D., … Demaria, M. (2019). Cellular Senescence: Defining a Path Forward. In Cell (Vol. 179, Issue 4, pp. 813–827). Cell Press. https://doi.org/10.1016/j.cell.2019.10.005
- Hernandez-Segura, A., Nehme, J., & Demaria, M. (2018). Hallmarks of Cellular Senescence. In Trends in Cell Biology (Vol. 28, Issue 6, pp. 436–453). Elsevier Ltd. https://doi.org/10.1016/j.tcb.2018.02.001
- Suryadevara, V., Hudgins, A. D., Rajesh, A., Pappalardo, A., Karpova, A., Dey, A. K., Hertzel, A., Agudelo, A., Rocha, A., Soygur, B., Schilling, B., Carver, C. M., Aguayo-Mazzucato, C., Baker, D. J., Bernlohr, D. A., Jurk, D., Mangarova, D. B., Quardokus, E. M., Enninga, E. A. L., … Neretti, N. (2024). SenNet recommendations for detecting senescent cells in different tissues. Nature Reviews Molecular Cell Biology, 25(12), 1001–1023. https://doi.org/10.1038/s41580-024-00738-8
- Ogrodnik, M., Carlos Acosta, J., Adams, P. D., d’Adda di Fagagna, F., Baker, D. J., Bishop, C. L., Chandra, T., Collado, M., Gil, J., Gorgoulis, V., Gruber, F., Hara, E., Jansen-Dürr, P., Jurk, D., Khosla, S., Kirkland, J. L., Krizhanovsky, V., Minamino, T., Niedernhofer, L. J., … Demaria, M. (2024). Guidelines for minimal information on cellular senescence experimentation in vivo. In Cell (Vol. 187, Issue 16, pp. 4150–4175). Elsevier B.V. https://doi.org/10.1016/j.cell.2024.05.059
- Kirkland, J. L., & Tchkonia, T. (2017). Cellular Senescence: A Translational Perspective. In EBioMedicine (Vol. 21, pp. 21–28). Elsevier B.V. https://doi.org/10.1016/j.ebiom.2017.04.013
- Wan, R., Wang, L., Zhu, M., Li, W., Duan, Y., & Yu, G. (2023). Cellular Senescence: A Troy Horse in Pulmonary Fibrosis. In International Journal of Molecular Sciences (Vol. 24, Issue 22). Multidisciplinary Digital Publishing Institute (MDPI). https://doi.org/10.3390/ijms242216410
- Lehmann, M., Korfei, M., Mutze, K., Klee, S., Skronska-Wasek, W., Alsafadi, H. N., Ota, C., Costa, R., Schiller, H. B., Lindner, M., Wagner, D. E., Günther, A., & Königshoff, M. (2017). Senolytic drugs target alveolar epithelial cell function and attenuate experimental lung fibrosis ex vivo. European Respiratory Journal, 50(2). https://doi.org/10.1183/13993003.02367-2016
- Schafer, M. J., White, T. A., Iijima, K., Haak, A. J., Ligresti, G., Atkinson, E. J., Oberg, A. L., Birch, J., Salmonowicz, H., Zhu, Y., Mazula, D. L., Brooks, R. W., Fuhrmann-Stroissnigg, H., Pirtskhalava, T., Prakash, Y. S., Tchkonia, T., Robbins, P. D., Aubry, M. C., Passos, J. F., … LeBrasseur, N. K. (2017). Cellular senescence mediates fibrotic pulmonary disease. Nature Communications, 8. https://doi.org/10.1038/ncomms14532
- Zhang, L., Pitcher, L. E., Yousefzadeh, M. J., Niedernhofer, L. J., Robbins, P. D., & Zhu, Y. (2022). Cellular senescence: a key therapeutic target in aging and diseases. In Journal of Clinical Investigation (Vol. 132, Issue 15). American Society for Clinical Investigation. https://doi.org/10.1172/JCI158450
- Kobayashi, Y., Tata, A., Konkimalla, A., Katsura, H., Lee, R. F., Ou, J., Banovich, N. E., Kropski, J. A., & Tata, P. R. (2020). Persistence of a regeneration-associated, transitional alveolar epithelial cell state in pulmonary fibrosis. Nature Cell Biology, 22(8), 934–946. https://doi.org/10.1038/s41556-020-0542-8
- Strunz, M., Simon, L. M., Ansari, M., Kathiriya, J. J., Angelidis, I., Mayr, C. H., Tsidiridis, G., Lange, M., Mattner, L. F., Yee, M., Ogar, P., Sengupta, A., Kukhtevich, I., Schneider, R., Zhao, Z., Voss, C., Stoeger, T., Neumann, J. H. L., Hilgendorff, A., … Schiller, H. B. (2020). Alveolar regeneration through a Krt8+ transitional stem cell state that persists in human lung fibrosis. Nature Communications, 11(1). https://doi.org/10.1038/s41467-020-17358-3
- Hoffman, E. T., Shah, A., Barboza, W. R., Rodriguez, L. R., Dherwani, R., Dooley, P. E., Minakin, K., Tomer, Y., Ayers, L. J., Jones, D., Murthy, A., Bennett, A., Lange, A. N., Bawa, P. S., Wang, F., Babu, A., Chavez, K., Nakamoto, R. S., Cooper, C. H., … Katzen, J. (2025). Aberrant intermediate alveolar epithelial cells promote pathogenic activation of lung fibroblasts in preclinical fibrosis models. Nature Communications , 16(1). https://doi.org/10.1038/s41467-025-63735-1
- Yao, C., Guan, X., Carraro, G., Parimon, T., Liu, X., Huang, G., Mulay, A., Soukiasian, H. J., David, G., Weigt, S. S., Belperio, J. A., Chen, P., Jiang, D., Noble, P. W., & Stripp, B. R. (2021). Senescence of Alveolar Type 2 Cells Drives Progressive Pulmonary Fibrosis. American Journal of Respiratory and Critical Care Medicine, 203(6), 707–717. https://doi.org/10.1164/rccm.202004-1274OC
- Krizhanovsky, V., Yon, M., Dickins, R. A., Hearn, S., Simon, J., Miething, C., Yee, H., Zender, L., & Lowe, S. W. (2008). Senescence of Activated Stellate Cells Limits Liver Fibrosis. Cell, 134(4), 657–667. https://doi.org/10.1016/j.cell.2008.06.049
- Reyes, N. S., Krasilnikov, M., Allen, N. C., Lee, J. Y., Hyams, B., Zhou, M., Ravishankar, S., Cassandras, M., Wang, C., Khan, I., Matatia, P., Johmura, Y., Molofsky, A., Matthay, M., Nakanishi, M., Sheppard, D., Campisi, J., & Peng, T. (2022). Sentinel p16INK4a+ cells in the basement membrane form a reparative niche in the lung. Science, 378(6616). https://doi.org/10.1126/science.abf3326
- Zhang, D., Liu, Y., Zhu, Y., Zhang, Q., Guan, H., Liu, S., Chen, S., Mei, C., Chen, C., Liao, Z., Xi, Y., Ouyang, S., Feng, X. H., Liang, T., Shen, L., & Xu, P. (2022). A non-canonical cGAS–STING–PERK pathway facilitates the translational program critical for senescence and organ fibrosis. Nature Cell Biology, 24(5), 766–782. https://doi.org/10.1038/s41556-022-00894-z
- Wu, Q., Leng, X., Zhang, Q., Zhu, Y.-Z., Zhou, R., Liu, Y., Mei, C., Zhang, D., Liu, S., Chen, S., Wang, X., Lin, A., Lin, X., Liang, T., Shen, L., Feng, X.-H., Xia, B., & Xu, P. (2024). IRF3 activates RB to authorize cGAS-STING-induced senescence and mitigate liver fibrosis. In Sci. Adv (Vol. 10). https://doi.org/10.1126/sciadv.adj2102
- Ng, B., Dong, J., D’Agostino, G., Viswanathan, S., Widjaja, A. A., Lim, W. W., Ko, N. S. J., Tan, J., Chothani, S. P., Huang, B., Xie, C., Pua, C. J., Chacko, A. M., Guimarães-Camboa, N., Evans, S. M., Byrne, A. J., Maher, T. M., Liang, J., Jiang, D., … Cook, S. A. (2019). Interleukin-11 is a therapeutic target in idiopathic pulmonary fibrosis. Science Translational Medicine, 11(511). https://doi.org/10.1126/scitranslmed.aaw1237
- Widjaja, A. A., Lim, W. W., Viswanathan, S., Chothani, S., Corden, B., Dasan, C. M., Goh, J. W. T., Lim, R., Singh, B. K., Tan, J., Pua, C. J., Lim, S. Y., Adami, E., Schafer, S., George, B. L., Sweeney, M., Xie, C., Tripathi, M., Sims, N. A., … Cook, S. A. (2024). Inhibition of IL-11 signalling extends mammalian healthspan and lifespan. Nature, 632(8023), 157–165. https://doi.org/10.1038/s41586-024-07701-9
- Guan, R., Yuan, L., Li, J., Wang, J., Li, Z., Cai, Z., Guo, H., Fang, Y., Lin, R., Liu, W., Wang, L., Zheng, Q., Xu, J., Zhou, Y., Qian, J., Ding, M., Luo, J., Li, Y., Yang, K., … Lu, W. (2022). Bone morphogenetic protein 4 inhibits pulmonary fibrosis by modulating cellular senescence and mitophagy in lung fibroblasts. European Respiratory Journal, 60(6). https://doi.org/10.1183/13993003.02307-2021
- Rehan, M., Kurundkar, D., Kurundkar, A. R., Logsdon, N. J., Smith, S. R., Chanda, D., Bernard, K., Sanders, Y. Y., Deshane, J. S., Dsouza, K. G., Rangarajan, S., Zmijewski, J. W., & Thannickal, V. J. (2021). Restoration of SIRT3 gene expression by airway delivery resolves age-associated persistent lung fibrosis in mice. Nature Aging, 1(2), 205–217. https://doi.org/10.1038/s43587-021-00027-5
- Chin, C., Ravichandran, R., Sanborn, K., Fleming, T., Wheatcroft, S. B., Kearney, M. T., Tokman, S., Walia, R., Smith, M. A., Flint, D. J., Mohanakumar, T., Bremner, R. M., & Sureshbabu, A. (2023). Loss of IGFBP2 mediates alveolar type 2 cell senescence and promotes lung fibrosis. Cell Reports Medicine, 4(3). https://doi.org/10.1016/j.xcrm.2023.100945
- Hu, L., Li, H., Zi, M., Li, W., Liu, J., Yang, Y., Zhou, D., Kong, Q. P., Zhang, Y., & He, Y. (2022). Why Senescent Cells Are Resistant to Apoptosis: An Insight for Senolytic Development. In Frontiers in Cell and Developmental Biology (Vol. 10). Frontiers Media S.A. https://doi.org/10.3389/fcell.2022.822816
- Abramson, J., Adler, J., Dunger, J., Evans, R., Green, T., Pritzel, A., Ronneberger, O., Willmore, L., Ballard, A. J., Bambrick, J., Bodenstein, S. W., Evans, D. A., Hung, C. C., O’Neill, M., Reiman, D., Tunyasuvunakool, K., Wu, Z., Žemgulytė, A., Arvaniti, E., … Jumper, J. M. (2024). Accurate structure prediction of biomolecular interactions with AlphaFold 3. Nature, 630(8016), 493–500. https://doi.org/10.1038/s41586-024-07487-w
- Smer-Barreto, V., Quintanilla, A., Elliott, R. J. R., Dawson, J. C., Sun, J., Campa, V. M., Lorente-Macías, Á., Unciti-Broceta, A., Carragher, N. O., Acosta, J. C., & Oyarzún, D. A. (2023). Discovery of senolytics using machine learning. Nature Communications, 14(1). https://doi.org/10.1038/s41467-023-39120-1
- Duran, I., Pombo, J., Sun, B., Gallage, S., Kudo, H., McHugh, D., Bousset, L., Barragan Avila, J. E., Forlano, R., Manousou, P., Heikenwalder, M., Withers, D. J., Vernia, S., Goldin, R. D., & Gil, J. (2024). Detection of senescence using machine learning algorithms based on nuclear features. Nature Communications , 15(1). https://doi.org/10.1038/s41467-024-45421-w
- Nguyen, N. D., Rosas, L., Khaliullin, T., Jiang, P., Hasanaj, E., Ovando-Ricardez, J. A., Bueno, M., Rahman, I., Pryhuber, G. S., Li, D., Ma, Q., Finkel, T., Königshoff, M., Eickelberg, O., Rojas, M., Mora, A. L., Lugo-Martinez, J., & Bar-Joseph, Z. (2024). scDOT: optimal transport for mapping senescent cells in spatial transcriptomics. Genome Biology, 25(1). https://doi.org/10.1186/s13059-024-03426-0
- Xu, Z., Ren, F., Wang, P., Cao, J., Tan, C., Ma, D., Zhao, L., Dai, J., Ding, Y., Fang, H., Li, H., Liu, H., Luo, F., Meng, Y., Pan, P., Xiang, P., Xiao, Z., Rao, S., Satler, C., … Zhavoronkov, A. (2025). A generative AI-discovered TNIK inhibitor for idiopathic pulmonary fibrosis: a randomized phase 2a trial. Nature Medicine, 31(8), 2602–2610. https://doi.org/10.1038/s41591-025-03743-2
- Rajurkar, C. B., Murugan, B., & Namasivayam, G. P. (2026). Artificial intelligence in cellular senescence research: a systematic review assessing methodological quality and reporting standards using PROBAST + AI and TRIPOD + AI. BMC Medical Research Methodology. https://doi.org/10.1186/s12874-026-02912-2
- Moons, K. G. M., Damen, J. A. A., Kaul, T., Hooft, L., Andaur Navarro, C., Dhiman, P., Beam, A. L., Van Calster, B., Celi, L. A., Denaxas, S., Denniston, A. K., Ghassemi, M., Heinze, G., Kengne, A. P., Maier-Hein, L., Liu, X., Logullo, P., McCradden, M. D., Liu, N., … Van Smeden, M. (2025). PROBAST+AI: An updated quality, risk of bias, and applicability assessment tool for prediction models using regression or artificial intelligence methods. BMJ. https://doi.org/10.1136/bmj-2024-082505
- Collins, G. S., Moons, K. G. M., Dhiman, P., Riley, R. D., Beam, A. L., Van Calster, B., Ghassemi, M., Liu, X., Reitsma, J. B., Van Smeden, M., Boulesteix, A. L., Camaradou, J. C., Celi, L. A., Denaxas, S., Denniston, A. K., Glocker, B., Golub, R. M., Harvey, H., Heinze, G., … Logullo, P. (2024). TRIPOD+AI statement: Updated guidance for reporting clinical prediction models that use regression or machine learning methods. BMJ, 385. https://doi.org/10.1136/bmj-2023-078378
- Hooijmans, C. R., Rovers, M. M., De Vries, R. B. M., Leenaars, M., Ritskes-Hoitinga, M., & Langendam, M. W. (2014). SYRCLE’s risk of bias tool for animal studies. BMC Medical Research Methodology, 14(1). https://doi.org/10.1186/1471-2288-14-43
- Justice, J. N., Nambiar, A. M., Tchkonia, T., LeBrasseur, N. K., Pascual, R., Hashmi, S. K., Prata, L., Masternak, M. M., Kritchevsky, S. B., Musi, N., & Kirkland, J. L. (2019). Senolytics in idiopathic pulmonary fibrosis: Results from a first-in-human, open-label, pilot study. EBioMedicine, 40, 554–563. https://doi.org/10.1016/j.ebiom.2018.12.052
- Nambiar, A., Kellogg, D., Justice, J., Goros, M., Gelfond, J., Pascual, R., Hashmi, S., Masternak, M., Prata, L., LeBrasseur, N., Limper, A., Kritchevsky, S., Musi, N., Tchkonia, T., & Kirkland, J. (2023). Senolytics dasatinib and quercetin in idiopathic pulmonary fibrosis: results of a phase I, single-blind, single-center, randomized, placebo-controlled pilot trial on feasibility and tolerability. EBioMedicine, 90. https://doi.org/10.1016/j.ebiom.2023.104481
- Lelarge, V., Capelle, R., Oger, F., Mathieu, T., & Le Calvé, B. (2024). Senolytics: from pharmacological inhibitors to immunotherapies, a promising future for patients’ treatment. In npj Aging (Vol. 10, Issue 1). Nature Research. https://doi.org/10.1038/s41514-024-00138-4
- Amor, C., Feucht, J., Leibold, J., Ho, Y. J., Zhu, C., Alonso-Curbelo, D., Mansilla-Soto, J., Boyer, J. A., Li, X., Giavridis, T., Kulick, A., Houlihan, S., Peerschke, E., Friedman, S. L., Ponomarev, V., Piersigilli, A., Sadelain, M., & Lowe, S. W. (2020). Senolytic CAR T cells reverse senescence-associated pathologies. Nature, 583(7814), 127–132. https://doi.org/10.1038/s41586-020-2403-9
- Amor, C., Fernández-Maestre, I., Chowdhury, S., Ho, Y. J., Nadella, S., Graham, C., Carrasco, S. E., Nnuji-John, E., Feucht, J., Hinterleitner, C., Barthet, V. J. A., Boyer, J. A., Mezzadra, R., Wereski, M. G., Tuveson, D. A., Levine, R. L., Jones, L. W., Sadelain, M., & Lowe, S. W. (2024). Prophylactic and long-lasting efficacy of senolytic CAR T cells against age-related metabolic dysfunction. Nature Aging, 4(3), 336–349. https://doi.org/10.1038/s43587-023-00560-5
- Ming, X., Yang, Z., Huang, Y., Wang, Z., Zhang, Q., Lu, C., Sun, Y., Chen, Y., Zhang, L., Wu, J., Shou, H., Lu, Z., & Wang, B. (2025). A chimeric peptide promotes immune surveillance of senescent cells in injury, fibrosis, tumorigenesis and aging. Nature Aging, 5(1), 28–47. https://doi.org/10.1038/s43587-024-00750-9
- Hinterleitner, C., Barthet, V. J. A., Goldberg, H. V., Vogt, K. C., Perea, A. M., Hillger, L. R., Ruiz, S., McHugh, D., Ho, Y.-J., Chaves-Perez, A., Skamagki, M., Flowers, S., Styers, H. C., Rekhtman, N., Zhuang, X., Dessotti Barretto, G., Li, X., Watson, J. T., Luan, W., … Lowe, S. W. (2026). Senescence-directed nanotherapy ameliorates fibrosis and overcomes immune exclusion in cancer. Science, 393(6818). https://doi.org/10.1126/science.aeg4791