Özet
Mesajcı RNA (mRNA) teknolojisi, koronavirüs hastalığı 2019 (COVID-19) pandemisi sırasında geniş ölçekli klinik doğrulamadan geçmiş ve bu süreçte kazanılan platform bilgisi, günümüzde kanser immünoterapisi alanına aktarılmaktadır. Bu derlemede, mRNA aşı teknolojisinin moleküler tasarım ilkelerinden başlayarak kişiselleştirilmiş kanser aşılarına uzanan gelişim süreci, bu sürecin temelini oluşturan biyoinformatik yöntemlerle birlikte ele alınmaktadır. mRNA dizisinin kararlılığını ve çevrimini artırmaya yönelik hesaplamalı tasarım algoritmaları, lipid nanopartikül tabanlı dağıtım sistemleri ve tümöre özgü neoantijenlerin belirlenmesinde kullanılan biyoinformatik iş akışları (somatik varyant tespiti, insan lökosit antijeni tiplendirmesi, peptid-major doku uyum kompleksi bağlanma tahmini, yapay zekâ destekli immünojenisite modellemesi) incelenmektedir. Ayrıca pankreas kanseri ve melanomda yürütülen kişiselleştirilmiş neoantijen aşısı klinik çalışmalarından elde edilen bulgular ile tümör mikroçevresinin aşı etkinliği üzerindeki belirleyici rolü, bu hesaplamalı süreçlerin klinik sonuçlarla ilişkisi bağlamında değerlendirilmektedir. Kendi kendini çoğaltan RNA ve dairesel RNA gibi yeni nesil platformların mevcut sınırlılıkları aşma potansiyeli de tartışılmaktadır. Derleme, mRNA tabanlı kişiselleştirilmiş immünoterapinin, hesaplamalı biyoloji ile klinik onkolojinin kesişiminde nasıl şekillendiğini bütüncül bir perspektifle özetlemeyi amaçlamaktadır.
Anahtar Kelimeler: mRNA aşı teknolojisi, neoantijen, biyoinformatik, kişiselleştirilmiş immünoterapi, lipid nanopartikül, kanser aşıları.
1. Giriş
mRNA tabanlı aşı teknolojisinin klinik ölçekte uygulanabilir hâle gelmesi, sentetik RNA moleküllerinin hücrenin doğuştan bağışıklık algılama mekanizmalarını (ör. Toll benzeri reseptörler) aşırı derecede aktive etmesi sorununun aşılmasına dayanmaktadır. Doğal olarak bulunan nükleosid modifikasyonlarının (ör. psödouridin) sentetik mRNA’ya dâhil edilmesinin, bu istenmeyen bağışıklık aktivasyonunu baskıladığı ve mRNA’nın hücre içi çevrilebilirliğini artırdığı gösterilmiştir¹,². Bu bulgu, güvenli ve etkili mRNA aşılarının geliştirilmesinin önündeki temel engellerden birini ortadan kaldırarak teknolojinin klinik uygulamaya taşınmasına zemin hazırlamıştır.
Mesajcı RNA (mRNA) tabanlı aşı teknolojisi, COVID-19 pandemisi sırasında BNT162b2 ve mRNA-1273 aşılarının hızlı geliştirilmesi ve geniş popülasyonlarda güvenli ve etkili bulunmasıyla klinik ölçekte doğrulanmıştır³⁻⁶ (Tablo 1). Bu iki aşının faz 3 klinik çalışmaları, sentetik mRNA moleküllerinin insan hücrelerinde antijen ifadesini tetikleyerek koruyucu bağışık yanıt oluşturabileceğini büyük ölçekte göstermiştir³,⁴. Söz konusu platformun COVID-19 bağlamındaki başarısı, aynı teknolojinin onkoloji alanında da kullanılabileceği fikrine dayanak oluşturmuştur; nitekim kişiselleştirilmiş kanser aşısı kavramı, her hastanın tümörüne özgü mutasyonlardan türetilen neoantijenlerin bir aşı platformu aracılığıyla bağışıklık sistemine sunulması esasına dayanmaktadır⁷⁻⁹.
Kişiselleştirilmiş mRNA kanser aşılarının geliştirilmesi, klasik anlamda bir ilaç tasarım sürecinden ziyade, büyük ölçüde hesaplamalı biyoloji ve biyoinformatik altyapısına dayanan çok aşamalı bir iş akışını gerektirmektedir. Bu süreç; mRNA dizisinin kararlılığını ve çevrilebilirliğini optimize eden algoritmalardan, tümör dokusundaki somatik mutasyonların tespit edilmesine, bu mutasyonlardan hangilerinin bağışıklık sistemi tarafından tanınabilir neoantijenler oluşturduğunun tahmin edilmesine kadar birçok hesaplamalı adımı kapsamaktadır. Bu derlemede, mRNA aşı teknolojisinin moleküler ve hesaplamalı temelleri; tümöre özgü neoantijenlerin belirlenmesinde kullanılan biyoinformatik yöntemler; bu yöntemlerin pankreas kanseri, melanom ve diğer tümör tiplerindeki klinik bağlamlarda uygulanmasından elde edilen bulgular; kendi kendini çoğaltan (self-amplifying) ile dairesel (circular) RNA gibi yeni nesil platformların bu alana katabileceği potansiyel katkılar; ve son olarak aşı etkinliğini şekillendiren tümör mikroçevresi dinamikleri ile kombinasyon stratejileri bütüncül bir perspektifle ele alınmaktadır.
| Aşı | Geliştirici | Doz şeması | Aşı etkinliği |
| BNT162b2 | Pfizer–BioNTech | 30 µg, 2 doz (21 gün arayla) | %95 |
| mRNA-1273 | Moderna / NIAID | 100 µg, 2 doz (28 gün arayla) | %94,1 |
Tablo 1. COVID-19 mRNA aşılarının faz 3 klinik çalışma verilerinin karşılaştırılması³,⁴.
2. mRNA Aşı Platformunun Moleküler ve Hesaplamalı Temelleri
2.1 mRNA Kararlılığı ve Kodon Optimizasyonunda Algoritmik Yaklaşımlar
Sentetik bir mRNA molekülünün hücre içi kararlılığı ve buna bağlı protein ifade düzeyi, aşı etkinliğini doğrudan belirleyen kritik parametrelerdendir. Bir protein dizisini kodlayan olası mRNA dizilerinin sayısı astronomik büyüklüktedir; örneğin SARS-CoV-2 spike proteinini kodlayan mRNA için yaklaşık 2,4 × 10⁶³² farklı olası dizi kombinasyonu bulunduğu bildirilmiştir¹⁰. Bu denli geniş bir tasarım uzayında en kararlı ve en yüksek ifade düzeyine sahip diziyi bulmak, geleneksel deneme-yanılma temelli kodon optimizasyonu yaklaşımlarıyla pratik olarak mümkün değildir. Bu sorunu çözmek amacıyla geliştirilen LinearDesign algoritması, hesaplamalı dilbilimden uyarlanan örgü ayrıştırma (lattice parsing) ilkelerini kullanarak mRNA ikincil yapı kararlılığı ile kodon kullanımını eş zamanlı olarak optimize etmektedir¹⁰. Bu algoritmanın, geleneksel kodon optimizasyonu kıyaslamalarına göre fare modellerinde antikor titresini önemli ölçüde artırdığı ve mRNA yarı ömrü ile protein ifadesini iyileştirdiği rapor edilmiştir¹⁰. RNA ikincil yapısı, kodon kullanımı ve 5’/3′ çevrilmeyen bölgelerin bir arada, kombinatoryal biçimde optimize edilmesinin de mRNA kararlılığını ve protein üretimini artırdığı gösterilmiştir¹¹. Bu tür hesaplamalı tasarım yaklaşımları, kişiselleştirilmiş kanser aşılarında olduğu gibi her hasta için özgün ve sınırlı zaman içinde üretilmesi gereken mRNA dizilerinin optimize edilmesinde de kullanılabilecek bir altyapı sunmaktadır.
2.2 Lipid Nanopartikül Tabanlı Dağıtım Sistemleri
mRNA molekülünün hücre dışı ortamda enzimatik yıkıma karşı hassas olması ve hücre zarını doğrudan geçememesi nedeniyle, etkili bir dağıtım sistemine ihtiyaç duyulmaktadır. Lipid nanopartiküller (LNP), iyonize edilebilir lipit, yardımcı fosfolipit, kolesterol ve polietilen glikol (PEG) bağlı lipitten oluşan dört bileşenli yapılarıyla, günümüzde klinik olarak en yaygın kullanılan mRNA dağıtım platformunu oluşturmaktadır¹²,¹³ (Tablo 2). İyonize edilebilir lipitlerin fizyolojik pH’ta nötr, endozomun asidik ortamında ise protonlanmış hâle gelmesi, endozomal membranın destabilize olmasını ve mRNA’nın sitoplazmaya salınmasını sağlayan temel mekanizma olarak tanımlanmaktadır¹². COVID-19 aşılarında kullanılan SM-102 ve ALC-0315 gibi iyonize edilebilir lipitlerin klinik ölçekte doğrulanması, LNP teknolojisinin kanser immünoterapisi de dâhil olmak üzere farklı mRNA uygulamalarına aktarılmasının önünü açmıştır¹². Mikroakışkan (microfluidic) üretim teknolojilerindeki gelişmeler, LNP formülasyonlarının boyut homojenliğini ve üretim ölçeklenebilirliğini artırarak, kişiselleştirilmiş aşılar için gereken hızlı ve hasta başına özgün üretim süreçlerine de katkı sağlamaktadır¹⁴ (Şekil 1).
| Bileşen | İşlevi | Örnek / not |
| İyonize edilebilir lipit | Endozomal kaçışı tetikler; fizyolojik pH’ta nötr, endozomda protonlanır | SM-102, ALC-0315 |
| Fosfolipit (yardımcı lipit) | Lipit çift tabakasının yapısal bütünlüğünü destekler | DSPC |
| Kolesterol | Membran akışkanlığını ve parçacık stabilitesini düzenler | – |
| PEG bağlı lipit | Parçacık boyutunu stabilize eder, opsonizasyonu azaltıp dolaşım ömrünü uzatır | – |
Tablo 2. Lipid nanopartikül (LNP) yapısındaki dört temel bileşen ve işlevleri. PEG: Polietilen glikol¹²⁻¹⁴.
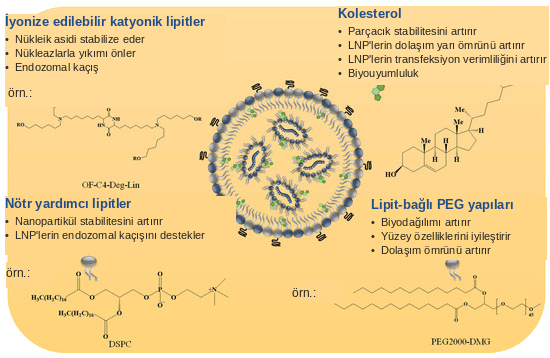
Şekil 1. Lipid nanopartikül (LNP) yapısını oluşturan dört temel bileşen ve bunların işlevleri şematik olarak gösterilmektedir. PEG: Polietilen glikol¹⁴.
3. Kişiselleştirilmiş Kanser Aşılarında Neoantijen Biyoinformatiği
Kişiselleştirilmiş kanser aşılarının temelinde, hastanın tümöründe saptanan somatik mutasyonlardan türeyen ve hastaya özgü HLA yapısı bağlamında bağışıklık sistemi tarafından tanınma potansiyeli taşıyan neoantijenlerin belirlenmesi yer almaktadır⁷,⁸. Bu belirleme süreci, sırasıyla somatik varyant tespiti, insan lökosit antijeni (HLA) tiplendirmesi, peptid-major doku uyum kompleksi (MHC) bağlanma tahmini ve peptid-MHC tanınma tahmini olmak üzere birbirini izleyen hesaplamalı adımlardan oluşan bir biyoinformatik iş akışı şeklinde tanımlanmaktadır¹⁵⁻¹⁷ (Tablo 3, Şekil 2).
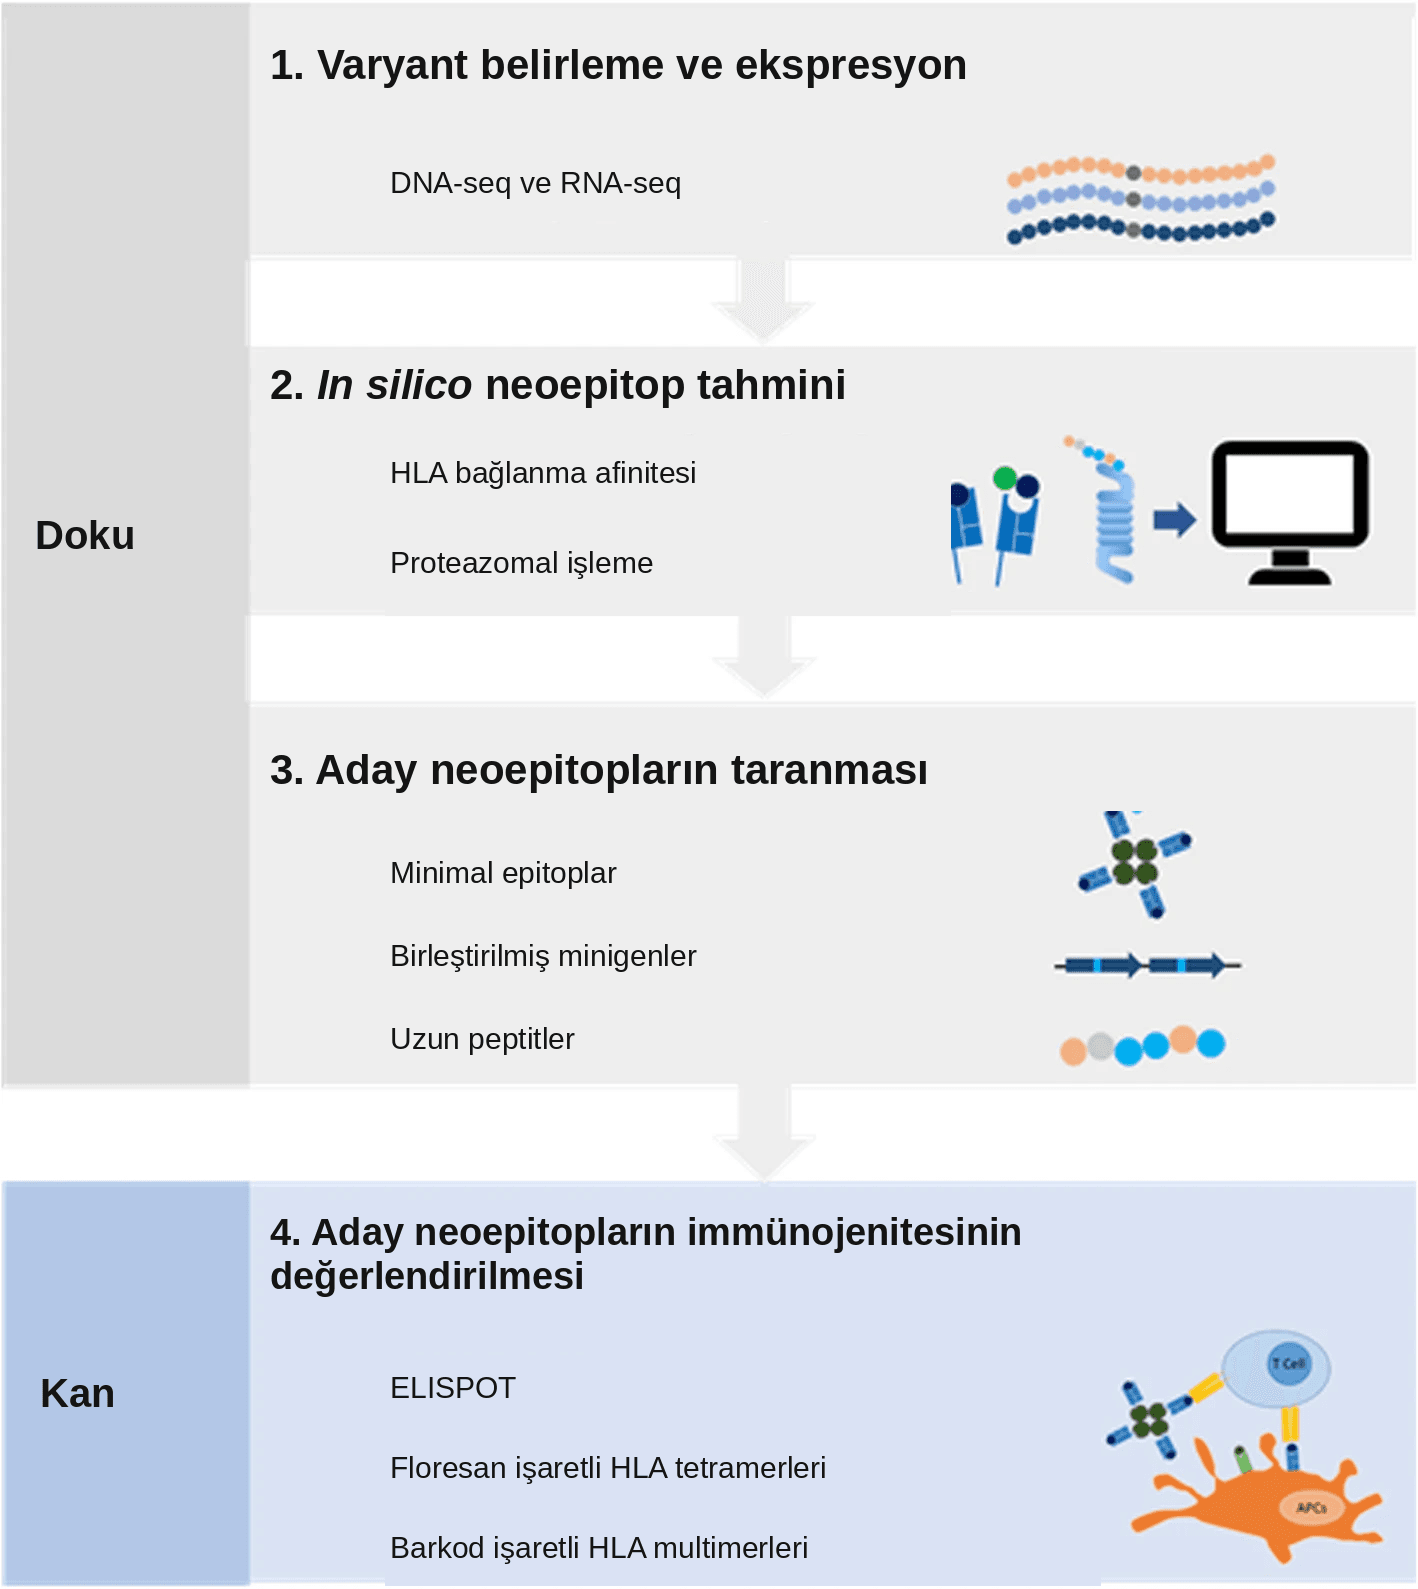
Şekil 2. Tümör dokusundaki varyant tespitinden kandaki immünojenisite değerlendirmesine uzanan neoantijen belirleme iş akışının dört ana aşaması gösterilmektedir. HLA: İnsan lökosit antijeni¹⁶.
3.1 Somatik Varyant Tespiti ve Tümör Mutasyon Yükü Tahmini
Neoantijen belirleme iş akışının ilk basamağını, tümör dokusunda tam ekzom veya tüm genom dizileme verileri üzerinden somatik mutasyonların tespit edilmesi oluşturmaktadır⁸. Tümör mutasyon yükü (TMB), tümörün mutasyonel özelliklerini değerlendirmede ve bazı immünoterapi yanıtlarıyla ilişkili bir biyobelirteç olarak kullanılmaktadır. Bununla birlikte, TMB tek başına neoantijen oluşumunu veya immünoterapi yanıtını kesin olarak öngöremez. Eşleştirilmiş normal doku örneği bulunmadığı durumlarda dahi, yalnızca RNA dizileme verilerinden TMB tahmini yapılabilen hesaplamalı yöntemler geliştirilmiştir; bu yaklaşımlar, klinik örneklem sınırlılıkları nedeniyle eşleştirilmiş normal doku elde edilemeyen vakalarda neoantijen iş akışının uygulanabilirliğini genişletmektedir¹⁸; TMB’nin geniş karakterizasyonu da katkı sağlamıştır¹⁹. TMB’nin bağışıklık kontrol noktası inhibitörlerine yanıtla ilişkisinin klinik faydası güçlü olmakla birlikte, kesim değerlerinin standartlaştırılması ve farklı tümör tiplerinde tutarlılığının sağlanması gibi sınırlılıklar barındırdığı da vurgulanmaktadır²⁰.
3.2 HLA Tiplendirme ve Peptid-HLA Bağlanma Afinitesi Tahmini
Tespit edilen somatik mutasyonların hangilerinin bağışıklık sistemi tarafından tanınabilir olduğunun belirlenmesi, hastaya özgü HLA alelinin doğru tiplendirilmesini ve aday peptidlerin bu HLA molekülüne bağlanma afinitesinin hesaplanmasını gerektirmektedir⁸. Yüksek verimli dizileme verilerinden hastaya özgü HLA alellerinin belirlenmesi için geliştirilen OptiType algoritması, tamsayı doğrusal programlama yaklaşımını kullanarak dört haneli çözünürlükte %97’nin üzerinde doğruluk sağladığını bildirmektedir²¹. HLA aleli belirlendikten sonra, aday peptidlerin bu alele bağlanma afinitesinin hesaplanması gerekmektedir; bu amaçla geliştirilen NetMHCpan-4.1 algoritması, kütle spektrometrisi ile elde edilen MHC-eluted ligand verilerini motif ayrıştırma yöntemiyle birleştirerek peptid-MHC bağlanma tahmininin doğruluğunu artırmıştır²²; MS verilerinin derin öğrenmeyle analizi de neoantijen tanımlamayı iyileştirmiştir²³. Bu tür algoritmalar, milyonlarca aday peptid arasından klinik olarak anlamlı, yüksek afiniteli neoantijen adaylarının önceliklendirilmesini sağlayan otomatik biyoinformatik hatlarının (pipeline) temel bileşenlerini oluşturmaktadır. Örneğin Seq2Neo adlı hat, ham dizileme verisinden başlayarak mutasyon kaynaklı peptidleri belirlemekte ve derin öğrenme tabanlı bir model aracılığıyla bu peptidleri T hücre bağışıklığını tetikleme olasılığına göre sıralamaktadır²⁴. Ekzom dizileme verisinden başlayarak tümöre özgü antijenleri belirlemeyi amaçlayan benzer in silico hatlar da literatürde tanımlanmıştır²⁵.
3.3 Yapay Zekâ Destekli İmmünojenisite Tahmini ve T Hücre Reseptörü Etkileşim Modellemesi
Bir peptidin HLA molekülüne bağlanabiliyor olması, tek başına o peptidin bağışıklık sistemi tarafından etkili biçimde tanınacağı anlamına gelmemektedir; peptid-MHC kompleksinin T hücre reseptörü (TCR) tarafından tanınması, ayrı bir hesaplamalı zorluk oluşturmaktadır. Derin öğrenme yöntemleri kullanılarak TCR-antijen bağlanma özgüllüğünü tahmin etmeye yönelik modeller geliştirilmiştir; bu modeller, sekans temelli örüntülerden yola çıkarak hangi TCR’lerin hangi peptid-MHC komplekslerini tanıyabileceğini öngörmeyi amaçlamaktadır²⁶,²⁷. Bunun yanı sıra, tümör infiltre eden lenfositlerden elde edilen TCR repertuvar dizileme verileri, aşı adayı neoantijenlerin immünojenisitesinin doğrulanmasında ve aşıya karşı gelişen bağışık yanıtın klinik çalışmalarda izlenmesinde kullanılmaktadır²⁸.
3.4 Yapay Zekâ Destekli Çok Aşamalı Neoantijen Keşfi
Neoantijen belirleme sürecinin her aşamasında biriken belirsizlikler (yanlış pozitif neoantijen seçimi ile antijen işlenmesi ve HLA sunumunun eksik modellenmesi gibi), yapay zekâ tabanlı yaklaşımların bu alana entegre edilmesini gerekli kılmaktadır²⁹. Yapay zekânın bu alandaki kullanımı; çoklu-omik verilerden neoantijen keşfi, HLA sunumunun tahmini, T hücre reseptörü–antijen etkileşimlerinin modellenmesi ve aşı bileşenlerinin tasarımı gibi farklı aşamaları kapsayabilmektedir³⁰,³¹. Bununla birlikte, hesaplamalı yöntemlerdeki bu ilerlemenin tek başına yeterli olmadığı; titiz deneysel doğrulama, üretim ölçeklenebilirliği ve düzenleyici uyumluluk gibi unsurlarla birlikte ele alınması gerektiği vurgulanmaktadır³⁰.
| Araç / yöntem | Amaç | Girdi verisi |
| RNA-seq tabanlı TMB kestirimi | Eşleştirilmiş normal doku olmadan tümör mutasyon yükü tahmini | Tümör RNA-seq verisi |
| OptiType | Yüksek doğrulukta HLA aleli tiplendirmesi | NGS verisi (RNA-seq/ekzom/genom) |
| NetMHCpan-4.1 / NetMHCIIpan-4.0 | Peptid–MHC bağlanma afinitesi tahmini | Peptid dizisi + HLA aleli |
| Seq2Neo | Uçtan uca neoantijen belirleme ve immünojenisite sıralaması | Ham DNA/RNA dizileme verisi |
| In silico neoantijen hattı | Ekzom verisinden tümöre özgü antijen belirleme | Ekzom dizileme verisi |
| Derin öğrenme tabanlı TCR–antijen modeli | TCR–peptid–MHC tanıma özgüllüğü tahmini | TCR dizisi + peptid-MHC kompleksi |
| TCR repertuvar dizilemesi | Aşı sonrası neoantijene özgü T hücre yanıtının doğrulanması/izlenmesi | Tümör infiltre lenfosit / periferik kan örneği |
Tablo 3. Neoantijen belirleme iş akışında kullanılan başlıca biyoinformatik araç ve yöntemler¹⁸⁻²⁸.
4. Klinik Uygulamalar: Kanser Aşılarından Kişiselleştirilmiş İmmünoterapiye
4.1 Pankreas Kanserinde Kişiselleştirilmiş RNA Neoantijen Aşıları
Yukarıda özetlenen biyoinformatik iş akışının klinik ortamda uygulanabilirliği, rezeke edilmiş pankreas duktal adenokarsinomu hastalarında yürütülen bir faz 1 çalışmasında değerlendirilmiştir. Bu çalışmada, hasta başına en fazla 20 tümöre özgü neoantijen içeren kişiselleştirilmiş bir mRNA aşısı olan autogene cevumeran‘ın, immünoterapi ve kemoterapi ile birlikte uygulandığında güvenli ve uygulanabilir olduğu gösterilmiştir; aşıya yanıt veren hastalarda kan dolaşımındaki tüm T hücrelerinin %10’una kadar ulaşan aşı kaynaklı T hücre genişlemesi gözlenmiştir³². Güçlü aşı yanıtı gösteren hastalarda, hastalıksız sağkalım süresinin yanıt vermeyen hastalara kıyasla belirgin biçimde uzadığı rapor edilmiştir³². Aynı hasta kohortunun 3,2 yıllık takibini içeren bir sonraki çalışmada, aşı kaynaklı CD8+ T hücre klonlarının ortalama tahmini yaşam süresinin 7,7 yıl olduğu ve bu klonların uzun dönem takipte sitotoksik, doku-yerleşik bellek benzeri (tissue-resident memory-like, T_RM-like) bir fenotip sergilediği bildirilmiştir³³. Bu bulgular, hesaplamalı olarak tasarlanan kişiselleştirilmiş neoantijen aşılarının uzun süreli bağışıklık belleği oluşturma potansiyeline sahip olabileceğini düşündürmektedir.
4.2 Melanomda Bireyselleştirilmiş Neoantijen Tedavisi ve İmmün Kontrol Noktası İnhibitörü Kombinasyonu
Kişiselleştirilmiş neoantijen aşılarının klinik kanıt temelini oluşturan ilk çalışmalardan birinde, sentetik uzun peptid tabanlı bireyselleştirilmiş bir neoantijen aşısının rezeke edilmiş melanom hastalarında güvenli olduğu ve aşılanan hastaların büyük kısmında birden fazla neoantijene karşı işlevsel CD4+ ve CD8+ T hücre yanıtı oluşturduğu gösterilmiştir; altı hastanın dördünde aşılama sonrasında 25 ay boyunca nüks gözlenmemiş, nüks eden iki hastada ise anti-PD-1 tedavisi sonrasında tam tümör gerilemesi elde edilmiştir³⁴. Bu erken bulgular, benzer bireyselleştirilmiş neoantijen yaklaşımının mRNA platformuna taşınarak randomize kontrollü bir faz 2b çalışması olan KEYNOTE-942’de test edilmesinin önünü açmıştır. Rezeke edilmiş yüksek riskli melanom hastalarında yürütülen bu randomize faz 2b çalışmasında, nüks veya ölüm olayı kombinasyon grubunda 107 hastanın 24’ünde (%22), pembrolizumab monoterapisi grubunda ise 50 hastanın 20’sinde (%40) gözlenmiş; 18 aylık hastalıksız sağkalım (RFS) oranları sırasıyla %79 ve %62, tehlike oranı ise 0,561 olarak bildirilmiştir³⁵. Bu çalışma, hesaplamalı olarak belirlenen hastaya özgü neoantijen setlerinin, mevcut standart immünoterapi yaklaşımlarına eklendiğinde ek klinik katkı sağlayabileceğine dair randomize düzeyde kanıt sunan ilk çalışmalardan biri olması bakımından önem taşımaktadır³⁵. Bununla birlikte, bu alandaki çalışmaların büyük çoğunluğunun sınırlı hasta sayılarıyla yürütülen erken faz çalışmaları olduğu ve bulguların daha geniş, farklı tümör tiplerini kapsayan çalışmalarla doğrulanmaya ihtiyaç duyduğu göz önünde bulundurulmalıdır³²⁻³⁵ (Tablo 4).
4.3 Farklı Kanser Tiplerine Genişleyen Klinik Görünüm
Pankreas kanseri ve melanom dışındaki tümör tiplerinde de kişiselleştirilmiş RNA tabanlı aşı yaklaşımlarını değerlendiren çalışmaların sayısı hızla artmaktadır; 2025 tarihli bir derlemede RNA tabanlı kanser aşılarını konu alan 120’den fazla aktif klinik çalışmanın yürütüldüğü, üretim süreçlerindeki iyileştirmelerin hasta başına özgün aşı üretim süresini kısalttığı ve yapay zekâ destekli neoantijen seçiminin bu çalışmaların önemli bir bileşeni hâline geldiği bildirilmektedir³⁶; teknolojinin biyoteknoloji açısından taşıdığı potansiyel de vurgulanmaktadır³⁷. Farklı tümör tiplerini kapsayan immünomodülatör aşı yaklaşımlarının terapötik etkinlik sinyalleri gösterdiğine dair ön bulgular da literatürde yer almaktadır³⁸⁻⁴⁰. Bu genişleyen klinik görünüm, kişiselleştirilmiş neoantijen aşılarının yalnızca pankreas kanseri ve melanomla sınırlı kalmayacağına, ancak her tümör tipi için hesaplamalı iş akışının ayrı ayrı doğrulanması gerektiğine işaret etmektedir.
| Çalışma | Kanser tipi / faz | Aşı / kombinasyon | Ana bulgu |
| Ott ve ark., 2017 | Melanom, Faz 1 (peptid aşısı, tarihsel) | Sentetik uzun peptid neoantijen aşısı | 6 hastanın 4’ünde 25 ay nüks yok; nüks eden 2 hastada anti-PD-1 sonrası tam gerileme |
| Rojas ve ark., 2023 | Pankreas duktal adenokarsinomu, Faz 1 | Autogene cevumeran + atezolizumab + kemoterapi | Yanıt verenlerde T hücre genişlemesi %10’a kadar; uzamış hastalıksız sağkalım |
| Sethna ve ark., 2025 | Aynı kohort, 3,2 yıllık takip | Autogene cevumeran + atezolizumab + kemoterapi | Aşı kaynaklı CD8+ T hücrelerin ort. tahmini yaşam süresi 7,7 yıl |
| Weber ve ark., 2024 (KEYNOTE-942) | Rezeke yüksek riskli melanom, Faz 2b (randomize) | mRNA-4157 (V940) + pembrolizumab | Kombinasyon, pembrolizumab monoterapisine kıyasla klinik sonuçları iyileştirdi |
Tablo 4. Kişiselleştirilmiş neoantijen aşısı klinik çalışmalarının karşılaştırılması³²⁻³⁵.
5. Yeni Nesil RNA Aşı Platformları: Kendi Kendini Çoğaltan ve Dairesel RNA Yaklaşımları
Standart mRNA platformunun sınırlılıklarını aşmaya yönelik alternatif RNA mimarileri geliştirilmektedir. Kendi kendini çoğaltan RNA (self-amplifying RNA, saRNA) platformu, viral replikaz enzimini kodlayan ek bir dizi barındırarak hücre içinde RNA’nın kendi kendini çoğaltmasını sağlamakta, bu sayede daha düşük RNA dozlarıyla karşılaştırılabilir bağışık yanıtlar elde edilebileceği öne sürülmektedir⁴¹. Nitekim bir saRNA-LNP aşı adayının fare modellerinde standart mRNA aşılarına kıyasla çok daha düşük dozlarda yüksek nötralizan antikor titreleri indükleyebildiği erken dönemde gösterilmiştir⁴². Trans-amplifying RNA (taRNA) gibi ayrı bileşenlerden oluşan varyantların da geliştirildiği, ancak bu platformların standart mRNA yaklaşımlarına kıyasla klinik üstünlüğünün henüz kesin biçimde ortaya konmadığı belirtilmektedir⁴¹. Klinik düzeyde, Omicron’a özgü kendi kendini çoğaltan bir mRNA güçlendirici aşısının randomize faz 2/3 çalışmasında iyi tolere edildiği, karşılaştırma aşısına göre daha yüksek nötralizan antikor yanıtı oluşturduğu ve 2-8°C’de 12 ay stabil kaldığı bildirilmiştir⁴³; bu bulgu, saRNA platformunun düşük kaynaklı ortamlarda dağıtım açısından da avantaj sunabileceğini düşündürmektedir.
Dairesel RNA (circular RNA, circRNA), kovalent olarak kapalı halka yapısı nedeniyle doğrusal mRNA’ya kıyasla artırılmış moleküler kararlılık sunan bir diğer yeni nesil platform olarak tanımlanmaktadır⁴⁴,⁴⁵. Ribozim aracılı kendiliğinden halkalanma teknikleriyle üretilen circRNA’ların, sürdürülebilir antijen ifadesi sağlayabildiği ve kanser bağlamında tümör ilişkili antijenlere ve neoantijenlere karşı güçlü CD8+ T hücre yanıtları indükleyebildiği preklinik çalışmalarda bildirilmektedir⁴⁴. circRNA’nın çeviri verimliliğinin iç ribozom giriş bölgesi (IRES) seçimi ve dizi optimizasyonuyla artırılabileceği ve bazı tasarımlarda doğrusal RNA’lara kıyasla daha uzun süreli protein üretimi sağlanabildiği bildirilmiştir⁴⁵,⁴⁶. Doğrusal RNA’ya kıyasla 168 saate varan sürede yüksek kararlılık ve sürdürülebilir ifade gösterdiği bildirilen circRNA’ların çeviri verimliliğinin iskelet modifikasyonlarıyla, immünojenisitesinin ise m6A modifikasyonlarıyla ayarlanabileceği öne sürülmektedir⁴⁷. Bu platformun doğrusal kontrollere kıyasla karşılaştırmalı çalışmaların standartlaştırılması ve ölçeklenebilir üretim altyapısının kurulması gibi alanlarda hâlâ açık sorunlar barındırdığı ifade edilmektedir⁴⁴,⁴⁷ (Tablo 5, Şekil 3).
| Özellik | Doğrusal mRNA | saRNA | circRNA |
| Yapı | Doğrusal, kepli ve poliadenillenmiş | Doğrusal + viral replikaz dizisi | Kovalent kapalı halka |
| Doz gereksinimi | Standart mRNA dozları | Daha düşük dozlarla güçlü yanıt oluşturma potansiyeli | Uzun süreli ifade nedeniyle doz azaltma potansiyeli |
| Kararlılık | Orta | Orta | Artırılmış (ekzonükleaza dirençli, ~168 saate varan ifade) |
| Klinik olgunluk | Klinik kullanımda; COVID-19 aşıları onaylı | Klinik çalışmalarda; COVID-19 için faz 2/3 verisi mevcut | Klinik öncesi / erken klinik araştırma aşaması |
Tablo 5. Doğrusal mRNA, kendi kendini çoğaltan RNA (saRNA) ve dairesel RNA (circRNA) platformlarının karşılaştırılması ³,⁴,¹²,¹⁴, ⁴¹⁻⁴⁷.
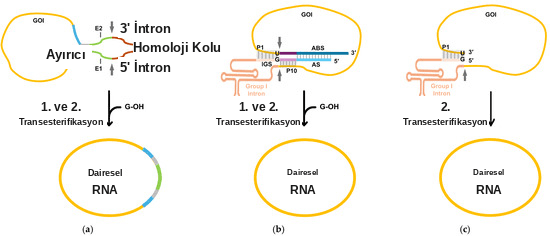
Şekil 3. Dairesel RNA (circRNA) üretiminde kullanılan grup I intron aracılı kendiliğinden halkalanma stratejilerinin şematik gösterimi: (a) homoloji kollu, (b) dahili kılavuz dizili ve (c) kısaltılmış grup I intron yaklaşımı. GOI: İlgi konusu gen (gene of interest); IGS: iç kılavuz dizisi (internal guide sequence); AS: antisens dizi (antisense sequence); ABS: antisens bağlanma dizisi (antisense-binding sequence)⁴⁴.
6. Tümör Mikroçevresi ve Kombinasyon Stratejileri
Kişiselleştirilmiş neoantijen aşılarının klinik etkinliği, yalnızca doğru neoantijenin hesaplamalı olarak belirlenmesine değil, aynı zamanda aşı sonrası oluşan bağışık yanıtın tümör mikroçevresi (TME) içinde işlev görebilmesine de bağlıdır. Tümör aşıları ile tümör mikroçevresi arasındaki karşılıklı etkileşimi konu alan araştırmaların son yıllarda belirgin biçimde arttığı, bibliyometrik analizlerle ortaya konmuştur⁴⁸. Anormal tümör damarlanması, hipoksi, metabolik rekabet ve immünsüpresif hücre popülasyonları gibi TME özelliklerinin aşı etkinliğini sınırlayabildiği; bu nedenle tümör mikroçevresinin aşı sonucunu etkileyen aktif bir unsur olarak ele alınması gerektiği vurgulanmaktadır⁴⁹. Bu çerçevede, aşılamanın immün kontrol noktası inhibisyonu, radyoterapi, stromal yeniden şekillendirme veya metabolik müdahalelerle birleştirilmesi, immünolojik açıdan “soğuk” tümörlerin tedaviye duyarlı “sıcak” tümörlere dönüştürülmesinde bir strateji olarak önerilmektedir⁴⁹. Aşı ile immün kontrol noktası inhibitörünün aynı periferik lenfoid organlara eş zamanlı hedeflenmesinin, kontrol noktası inhibitörüne bağlı pnömoniti azaltırken antitümör bağışıklığı güçlendirebildiği hayvan modellerinde gösterilmiştir⁵⁰; bu bulgu, kombinasyon stratejilerinin yalnızca etkinlik değil, güvenlik profili açısından da optimize edilebileceğine işaret etmektedir.
7. Sonuç
mRNA teknolojisi, COVID-19 aşılarıyla kazandığı klinik güvenilirliği temel alarak kişiselleştirilmiş kanser immünoterapisi alanına taşınmaktadır. Bu geçişin merkezinde, mRNA dizisinin hesaplamalı olarak optimize edilmesinden tümöre özgü neoantijenlerin somatik varyant tespiti, HLA tiplendirmesi, peptid-MHC bağlanma tahmini ve immünojenisite modellemesi yoluyla belirlenmesine uzanan çok aşamalı bir biyoinformatik iş akışı yer almaktadır. Pankreas kanseri ve melanomda yürütülen klinik çalışmalar, bu hesaplamalı süreçlerle tasarlanan kişiselleştirilmiş aşıların güvenli olduğunu ve bazı hastalarda uzun süreli, işlevsel T hücresi yanıtları oluşturabildiğini göstermiştir; ancak mevcut kanıtların büyük ölçüde sınırlı hasta sayılı erken faz çalışmalarına dayandığı ve tümör mikroçevresinin aşı etkinliğini şekillendiren önemli bir değişken olduğu göz ardı edilmemelidir. Kendi kendini çoğaltan ve dairesel RNA gibi yeni nesil platformlar, doz ve kararlılık açısından potansiyel avantajlar sunsa da klinik üstünlükleri henüz kesinleşmemiştir. Genel olarak literatür, kişiselleştirilmiş mRNA kanser aşılarının hesaplamalı biyoloji ile klinik onkolojinin kesişiminde hızla olgunlaşan, ancak geniş ölçekli randomize kanıta ve farklı tümör tiplerinde doğrulamaya hâlâ ihtiyaç duyan bir alan olduğunu ortaya koymaktadır.
Kaynakça
- Karikó, K., Buckstein, M., Ni, H., & Weissman, D. (2005). Suppression of RNA recognition by Toll-like receptors: The impact of nucleoside modification and the evolutionary origin of RNA. Immunity, 23(2), 165–175. https://doi.org/10.1016/j.immuni.2005.06.008
- Karikó, K., Muramatsu, H., Welsh, F. A., Ludwig, J., Kato, H., Akira, S., & Weissman, D. (2008). Incorporation of pseudouridine into mRNA yields superior nonimmunogenic vector with increased translational capacity and biological stability. Molecular Therapy, 16(11), 1833–1840. https://doi.org/10.1038/mt.2008.200
- Polack, F. P., Thomas, S. J., Kitchin, N., Absalon, J., Gurtman, A., Lockhart, S., Perez, J. L., Pérez Marc, G., Moreira, E. D., Zerbini, C., Bailey, R., Swanson, K. A., Roychoudhury, S., Koury, K., Li, P., Kalina, W. V., Cooper, D., Frenck, R. W., Jr., Hammitt, L. L., . . . Gruber, W. C. (2020). Safety and efficacy of the BNT162b2 mRNA Covid-19 vaccine. New England Journal of Medicine, 383(27), 2603–2615. https://doi.org/10.1056/NEJMoa2034577
- Baden, L. R., El Sahly, H. M., Essink, B., Kotloff, K., Frey, S., Novak, R., Diemert, D., Spector, S. A., Rouphael, N., Creech, C. B., McGettigan, J., Khetan, S., Segall, N., Solis, J., Brosz, A., Fierro, C., Schwartz, H., Neuzil, K., Corey, L., . . . Zaks, T. (2021). Efficacy and safety of the mRNA-1273 SARS-CoV-2 vaccine. New England Journal of Medicine, 384(5), 403–416. https://doi.org/10.1056/NEJMoa2035389
- Pardi, N., Hogan, M. J., Porter, F. W., & Weissman, D. (2018). mRNA vaccines — a new era in vaccinology. Nature Reviews Drug Discovery, 17(4), 261–279. https://doi.org/10.1038/nrd.2017.243
- Cromer, D., Steain, M., Reynaldi, A., Schlub, T. E., Khan, S. R., Sasson, S. C., Kent, S. J., Khoury, D. S., & Davenport, M. P. (2023). Predicting vaccine effectiveness against severe COVID-19 over time and against variants: A meta-analysis. Nature Communications, 14, 1633. https://doi.org/10.1038/s41467-023-37176-7
- Sahin, U., & Türeci, Ö. (2018). Personalized vaccines for cancer immunotherapy. Science, 359(6382), 1355–1360. https://doi.org/10.1126/science.aar7112
- Blass, E., & Ott, P. A. (2021). Advances in the development of personalized neoantigen-based therapeutic cancer vaccines. Nature Reviews Clinical Oncology, 18(4), 215–229. https://doi.org/10.1038/s41571-020-00460-2
- Hollingsworth, R. E., & Jansen, K. (2019). Turning the corner on therapeutic cancer vaccines. npj Vaccines, 4, 7. https://doi.org/10.1038/s41541-019-0103-y
- Zhang, H., Zhang, L., Lin, A., Xu, C., Li, Z., Liu, K., Liu, B., Ma, X., Zhao, F., Jiang, H., Chen, C., Shen, H., Li, H., Mathews, D. H., Zhang, Y., & Huang, L. (2023). Algorithm for optimized mRNA design improves stability and immunogenicity. Nature, 621(7978), 396–403. https://doi.org/10.1038/s41586-023-06127-z
- Leppek, K., Byeon, G. W., Kladwang, W., Wayment-Steele, H. K., Kerr, C. H., Xu, A. F., Kim, D. S., Topkar, V. V., Choe, C., Rothschild, D., Tiu, G. C., Wellington-Oguri, R., Fujii, K., Sharma, E., Watkins, A. M., Nicol, J. J., Romano, J., Tunguz, B., Diaz, F., . . . Das, R. (2022). Combinatorial optimization of mRNA structure, stability, and translation for RNA-based therapeutics. Nature Communications, 13, 1536. https://doi.org/10.1038/s41467-022-28776-w
- Hou, X., Zaks, T., Langer, R., & Dong, Y. (2021). Lipid nanoparticles for mRNA delivery. Nature Reviews Materials, 6(12), 1078–1094. https://doi.org/10.1038/s41578-021-00358-0
- Cullis, P. R., & Hope, M. J. (2017). Lipid nanoparticle systems for enabling gene therapies. Molecular Therapy, 25(7), 1467–1475. https://doi.org/10.1016/j.ymthe.2017.03.013
- Swetha, K., Kotla, N. G., Tunki, L., Jayaraj, A., Bhargava, S. K., Hu, H., Bonam, S. R., & Kurapati, R. (2023). Recent advances in the lipid nanoparticle-mediated delivery of mRNA vaccines. Vaccines, 11(3), 658. https://doi.org/10.3390/vaccines11030658
- Zhao, X., Wei, L., & Zhang, X. (2025). Computational methods and data resources for predicting tumor neoantigens. Briefings in Bioinformatics, 26(4), bbaf302. https://doi.org/10.1093/bib/bbaf302
- Jiang, T., Shi, T., Zhang, H., Wei, J., Ren, S., & Zhou, C. (2019). Tumor neoantigens: From basic research to clinical applications. Journal of Hematology & Oncology, 12, 93. https://doi.org/10.1186/s13045-019-0787-5
- Pishesha, N., Harmand, T. J., & Ploegh, H. L. (2022). A guide to antigen processing and presentation. Nature Reviews Immunology, 22(12), 751–764. https://doi.org/10.1038/s41577-022-00707-2
- Katzir, R., Rudberg, N., & Yizhak, K. (2022). Estimating tumor mutational burden from RNA-sequencing without a matched-normal sample. Nature Communications, 13(1), 3092. https://doi.org/10.1038/s41467-022-30753-2
- Chalmers, Z. R., Connelly, C. F., Fabrizio, D., Gay, L., Ali, S. M., Ennis, R., Schrock, A., Campbell, B., Shlien, A., Chmielecki, J., Huang, F., He, Y., Sun, J., Tabori, U., Kennedy, M., Lieber, D. S., Roels, S., White, J., Otto, G. A., . . . Frampton, G. M. (2017). Analysis of 100,000 human cancer genomes reveals the landscape of tumor mutational burden. Genome Medicine, 9, 34. https://doi.org/10.1186/s13073-017-0424-2
- Budczies, J., Kazdal, D., Menzel, M., Beck, S., Kluck, K., Altbürger, C., Schwab, C., Allgäuer, M., Ahadova, A., Kloor, M., Schirmacher, P., Peters, S., Krämer, A., Christopoulos, P., & Stenzinger, A. (2024). Tumour mutational burden: Clinical utility, challenges and emerging improvements. Nature Reviews Clinical Oncology, 21(10), 725–742. https://doi.org/10.1038/s41571-024-00932-9
- Szolek, A., Schubert, B., Mohr, C., Sturm, M., Feldhahn, M., & Kohlbacher, O. (2014). OptiType: Precision HLA typing from next-generation sequencing data. Bioinformatics, 30(23), 3310–3316. https://doi.org/10.1093/bioinformatics/btu548
- Reynisson, B., Alvarez, B., Paul, S., Peters, B., & Nielsen, M. (2020). NetMHCpan-4.1 and NetMHCIIpan-4.0: improved predictions of MHC antigen presentation by concurrent motif deconvolution and integration of MS MHC eluted ligand data. Nucleic Acids Research, 48(W1), W449–W454. https://doi.org/10.1093/nar/gkaa379
- Bulik-Sullivan, B., Busby, J., Palmer, C. D., Davis, M. J., Murphy, T., Clark, A., Busby, M., Duke, F., Yang, A., Young, L., Ojo, N. C., Caldwell, K., Abhyankar, J., Boucher, T., Hart, M. G., Makarov, V., De Montpreville, V. T., Mercier, O., Chan, T. A., . . . Yelensky, R. (2019). Deep learning using tumor HLA peptide mass spectrometry datasets improves neoantigen identification. Nature Biotechnology, 37(1), 55–63. https://doi.org/10.1038/nbt.4313
- Diao, K., Chen, J., Wu, T., Wang, X., Wang, G., Sun, X., Zhao, X., Wu, C., Wang, J., Yao, H., Gerarduzzi, C., & Liu, X.-S. (2022). Seq2Neo: A comprehensive pipeline for cancer neoantigen immunogenicity prediction. International Journal of Molecular Sciences, 23(19), 11624. https://doi.org/10.3390/ijms231911624
- Morazán-Fernández, D., Mora, J., & Molina-Mora, J. A. (2022). In silico pipeline to identify tumor-specific antigens for cancer immunotherapy using exome sequencing data. Phenomics, 3(2), 130–137. https://doi.org/10.1007/s43657-022-00084-9
- Lu, T., Zhang, Z., Zhu, J., Wang, Y., Jiang, P., Xiao, X., Bernatchez, C., Heymach, J. V., Gibbons, D. L., Wang, J., Xu, L., Reuben, A., & Wang, T. (2021). Deep learning-based prediction of the T cell receptor–antigen binding specificity. Nature Machine Intelligence, 3(10), 864–875. https://doi.org/10.1038/s42256-021-00383-2
- Sidhom, J.-W., Larman, H. B., Pardoll, D. M., & Baras, A. S. (2021). DeepTCR is a deep learning framework for revealing sequence concepts within T-cell repertoires. Nature Communications, 12, 1605. https://doi.org/10.1038/s41467-021-21879-w
- Frank, M. L., Lu, K., Erdogan, C., Han, Y., Hu, J., Wang, T., Heymach, J. V., Zhang, J., & Reuben, A. (2023). T-cell receptor repertoire sequencing in the era of cancer immunotherapy. Clinical Cancer Research, 29(6), 994–1008. https://doi.org/10.1158/1078-0432.CCR-22-2469
- Bulashevska, A., Nacsa, Z., Lang, F., Braun, M., Machyna, M., Diken, M., Childs, L., & König, R. (2024). Artificial intelligence and neoantigens: paving the path for precision cancer immunotherapy. Frontiers in Immunology, 15, 1394003. https://doi.org/10.3389/fimmu.2024.1394003
- Wei, C.-Y., Lin, H.-C., Wu, C.-J., Kuo, C.-N., Chang, C.-M., Chou, W.-H., Chou, S.-P., Feng, S.-H., Huang, W.-C., Jiang, S., Fairfax, B. P., Lee, K.-Y., & Chang, W.-C. (2026). Artificial intelligence for translational personalized neoantigen cancer vaccine development. Journal of Biomedical Science, 33(1), 87. https://doi.org/10.1186/s12929-026-01286-3
- Tejaswi, L., Ramesh, P., Aditya, S., Raju, R., & Prasad, T. S. K. (2025). Computational neoantigen prediction for cancer immunotherapy. Genes & Immunity, 26(6), 531–538. https://doi.org/10.1038/s41435-025-00365-z
- Rojas, L. A., Sethna, Z., Soares, K. C., Olcese, C., Pang, N., Patterson, E., Lihm, J., Ceglia, N., Guasp, P., Chu, A., Yu, R., Chandra, A. K., Waters, T., Ruan, J., Amisaki, M., Zebboudj, A., Odgerel, Z., Payne, G., Derhovanessian, E., . . . Balachandran, V. P. (2023). Personalized RNA neoantigen vaccines stimulate T cells in pancreatic cancer. Nature, 618(7963), 144–150. https://doi.org/10.1038/s41586-023-06063-y
- Sethna, Z., Guasp, P., Reiche, C., Milighetti, M., Ceglia, N., Patterson, E., … Balachandran, V. P. (2025). RNA neoantigen vaccines prime long-lived CD8+ T cells in pancreatic cancer. Nature, 639(8056), 1042–1051. https://doi.org/10.1038/s41586-024-08508-4
- Ott, P. A., Hu, Z., Keskin, D. B., Shukla, S. A., Sun, J., Bozym, D. J., Zhang, W., Luoma, A., Giobbie-Hurder, A., Peter, L., Chen, C., Olive, O., Carter, T. A., Li, S., Lieb, D. J., Eisenhaure, T., Gjini, E., Stevens, J., Lane, W. J., . . . Wu, C. J. (2017). An immunogenic personal neoantigen vaccine for patients with melanoma. Nature, 547(7662), 217–221. https://doi.org/10.1038/nature22991
- Weber, J. S., Carlino, M. S., Khattak, A., Meniawy, T., Ansstas, G., Taylor, M. H., Kim, K. B., McKean, M., Long, G. V., Sullivan, R. J., Faries, M., Tran, T. T., Cowey, C. L., Pecora, A., Shaheen, M., Segar, J., Medina, T., Atkinson, V., Gibney, G. T., . . . Zaks, T. (2024). Individualised neoantigen therapy mRNA-4157 (V940) plus pembrolizumab versus pembrolizumab monotherapy in resected melanoma (KEYNOTE-942): a randomised, phase 2b study. The Lancet, 403(10427), 632–644. https://doi.org/10.1016/S0140-6736(23)02268-7
- Magoola, M., & Niazi, S. K. (2025). Current progress and future perspectives of RNA-based cancer vaccines: A 2025 update. Cancers, 17(11), 1882. https://doi.org/10.3390/cancers17111882
- Jackson, N. A. C., Kester, K. E., Casimiro, D., Gurunathan, S., & DeRosa, F. (2020). The promise of mRNA vaccines: A biotech and industrial perspective. npj Vaccines, 5, 11. https://doi.org/10.1038/s41541-020-0159-8
- Han, T., Liu, G., Bao, C., Zong, J., Fei, C., Li, J., Xu, S., Ma, Q., & Qian, Y. (2025). Immunomodulatory vaccine demonstrates therapeutic efficacy across cancer types. Scientific Reports, 15, 38138. https://doi.org/10.1038/s41598-025-21924-4
- Yarchoan, M., Gane, E. J., Marron, T. U., Perales-Linares, R., Yan, J., Cooch, N., Shu, D. H., Fertig, E. J., Kagohara, L. T., Bartha, G., Northcott, J., Lyle, J., Rochestie, S., Peters, J., Connor, J. T., Jaffee, E. M., Csiki, I., Weiner, D. B., Perales-Puchalt, A., & Sardesai, N. Y. (2024). Personalized neoantigen vaccine and pembrolizumab in advanced hepatocellular carcinoma: A phase 1/2 trial. Nature Medicine, 30(4), 1044–1053. https://doi.org/10.1038/s41591-024-02894-y
- Braun, D. A., Moranzoni, G., Chea, V., McGregor, B. A., Blass, E., Tu, C. R., Vanasse, A. P., Forman, C., Forman, J., Afeyan, A. B., Schindler, N. R., Liu, Y., Li, S., Southard, J., Chang, S. L., Hirsch, M. S., LeBoeuf, N. R., Olive, O., Mehndiratta, A., . . . Choueiri, T. K. (2025). A neoantigen vaccine generates antitumour immunity in renal cell carcinoma. Nature, 639(8054), 474–482. https://doi.org/10.1038/s41586-024-08507-5
- Schmidt, C., & Schnierle, B. S. (2023). Self-amplifying RNA vaccine candidates: Alternative platforms for mRNA vaccine development. Pathogens, 12(1), 138. https://doi.org/10.3390/pathogens12010138
- McKay, P. F., Hu, K., Blakney, A. K., Samnuan, K., Brown, J. C., Penn, R., Zhou, J., Bouton, C. R., Rogers, P., Polra, K., Lin, P. J. C., Barbosa, C., Tam, Y. K., Barclay, W. S., & Shattock, R. J. (2020). Self-amplifying RNA SARS-CoV-2 lipid nanoparticle vaccine candidate induces high neutralizing antibody titers in mice. Nature Communications, 11, 3523. https://doi.org/10.1038/s41467-020-17409-9
- Saraf, A., Gurjar, R., Kaviraj, S., Kulkarni, A., Kumar, D., Kulkarni, R., Virkar, R., Krishnan, J., Yadav, A., Baranwal, E., Singh, A., Raghuwanshi, A., Agarwal, P., Savergave, L., & Singh, S. (2024). An Omicron-specific, self-amplifying mRNA booster vaccine for COVID-19: a phase 2/3 randomized trial. Nature Medicine, 30(5), 1363–1372. https://doi.org/10.1038/s41591-024-02955-2
- Lee, K. H., Lee, J., & Lee, S.-W. (2026). Circular RNA as a new vaccine platform: Considerations, challenges, and perspectives. Vaccines, 14(3), 221. https://doi.org/10.3390/vaccines14030221
- Wesselhoeft, R. A., Kowalski, P. S., & Anderson, D. G. (2018). Engineering circular RNA for potent and stable translation in eukaryotic cells. Nature Communications, 9, 2629. https://doi.org/10.1038/s41467-018-05096-6
- Chen, R., Wang, S. K., Belk, J. A., Amaya, L., Li, Z., Cardenas, A., Abe, B. T., Chen, C.-K., Wender, P. A., & Chang, H. Y. (2023). Engineering circular RNA for enhanced protein production. Nature Biotechnology, 41(2), 262–272. https://doi.org/10.1038/s41587-022-01393-0
- Gong, Z., Hu, W., Zhou, C., Guo, J., Yang, L., & Wang, B. (2025). Recent advances and perspectives on the development of circular RNA cancer vaccines. npj Vaccines, 10(1), 41. https://doi.org/10.1038/s41541-025-01097-x
- Liu, Y., Li, S., Chen, L., Lin, L., Xu, C., Qiu, H., Li, X., Cao, H., & Liu, K. (2024). Global trends in tumor microenvironment-related research on tumor vaccine: A review and bibliometric analysis. Frontiers in Immunology, 15, 1341596. https://doi.org/10.3389/fimmu.2024.1341596
- Shen, Z., Feng, Q., Wang, F., & Luo, H. (2026). Bidirectional interplay between tumor vaccines and the tumor microenvironment: Mechanisms, cold-to-hot conversion, and combination strategies. Vaccines, 14(8), 658. https://doi.org/10.3390/vaccines14080658
- Wang, Z., Zuo, S., Wan, X., He, Y., Jiang, X., Fan, G., Liu, Q., Shao, D., Liu, Q., & Zhang, Y. (2026). Precise regulation of cancer vaccine and immune checkpoint inhibitor synergy potentiates immunotherapy with reduced immune-related pneumonitis. Materials Today Bio, 37, 102968. https://doi.org/10.1016/j.mtbio.2026.102968
